

COVID-19 MRNR vakcina apsaugo nuo SARS-CoV-2 Omicron BA.1 infekcijos dietos sukeltoms nutukusioms pelėms, padidindama šeimininko įgimtą antivirusinį atsaką
Dec 06, 2023
Santrauka
Fonas
Nutukimas yra pasaulinė epidemija ir laikomas sunkiu 2019 m. koronavirusinės ligos (COVID-19) pasireiškimo rizikos veiksniu. Sunkaus ūminio kvėpavimo sindromo koronaviruso 2 (SARS-CoV-2) patogeniškumas ir nutukusių asmenų šeimininko atsakas į infekciją, pakartotinį užsikrėtimą ir vakcinaciją lieka nevisiškai suprantamas.
Metodai
Naudodami dietos sukeltų nutukusių (DIO) pelių modelį, tyrėme SARS-CoV-2 Alpha- ir Omicron BA1-sukeltas ligos apraiškas ir šeimininko imuninį atsaką į infekciją, pakartotinę infekciją ir COVID{ {6}} mRNR vakcinacija.
Išvados
Skirtingai nuo liesų pelių, Omicron BA.1 ir Alpha DIO pelių plaučiuose pasikartojo iki panašių lygių ir sukėlė panašų audinių pažeidimo laipsnį. Svarbu tai, kad tiek T ląstelių, tiek B ląstelių sukeltas adaptyvus imuninis atsakas į SARS-CoV-2 infekciją arba COVID-19 mRNR vakcinaciją DIO pelėms yra susilpnėjęs, todėl padidėja pakartotinio užsikrėtimo polinkis ir sumažėja vakcinos kiekis. efektyvumą. Tačiau, nepaisant neutralizuojančių antikūnų nebuvimo, vakcinuotos DIO pelės yra apsaugotos nuo plaučių pažeidimo po Omicron poveikio, kartu su žymiai daugiau IFN ir IFN gamybos plaučių audinyje. Plaučių RNAseq ir vėlesni eksperimentai parodė, kad COVID-19 mRNR vakcinacija DIO pelėms padidino antivirusinį įgimtą imuninį atsaką, įskaitant IFN ekspresiją, palyginti su neskiepytomis kontrolinėmis grupėmis.

cistanche augalą stiprinanti imuninė sistema
Interpretacija
Mūsų išvados rodo, kad COVID{0}} mRNR vakcinacija sustiprina šeimininko įgimtą antivirusinį atsaką nutukimo atveju, o tai tam tikru laipsniu apsaugo DIO peles, kai adaptyvus imunitetas nėra optimalus.
Finansavimas
Visą finansavimo įstaigų, prisidėjusių prie šio tyrimo, sąrašą rasite skiltyje „Padėkos“.
Raktiniai žodžiai: Nutukimas; Dietos sukelta nutukusi pelė; SARS-CoV-2}}; COVID-19; Vakcinacija; Omikronas
Įvadas
2019 m. koronavirusinę ligą (COVID-19) sukelia sunkus ūminio kvėpavimo sindromo koronavirusas-2 (SARS CoV-2), dėl kurio užsikrėtė daugiau nei 630 mln. žmonių ir mirė daugiau nei 6,5 mln. –3 Senyvas amžius ir gretutinės ligos, įskaitant hipertenziją, nutukimą, tam tikrus vėžinius susirgimus ir širdies ir kraujagyslių ligas, buvo pasiūlyti kaip sunkios COVID išsivystymo rizikos veiksniai-19.4 Tarp šių būklių šiuo metu nutukimas laikomas pasauline epidemija ir yra susijęs su tipu. II cukrinis diabetas, širdies ir kraujagyslių ligos, hipertenzija ir nealkoholinė suriebėjusių kepenų liga dėl lėtinio mažo laipsnio sisteminio uždegimo.5 Ankstesni tyrimai parodė, kad dėl dietos sukeltų nutukusių (DIO) pelių įgimtas imuninis atsakas sutriko ir po to išsivystė sunkus plaučių pažeidimas. pandeminė gripo H1N1 infekcija.6–8 Nuo COVID{18}} pandemijos protrūkio klinikiniai pranešimai rodo, kad su nutukimu susijusiomis ligomis sergantiems žmonėms gresia didesnė COVID{20}} rizika ir jie yra labiau linkę į sunkias ligas. 9,10 Be to, neseniai atliktas tyrimas parodė, kad nutukimas yra susijęs su uždelstu SARS-CoV-2 klirensu ir nepalankia COVID-19 pacientų prognoze.11 Tačiau SARS-CoV patogeniškumas-2 ir šeimininko atsakas į nutukusių žmonių pakartotinį užsikrėtimą ir vakcinaciją.12 Nuo 2019 m. atsiradimo SARS-CoV-2 toliau vystosi ir sukuria naujus susirūpinimą keliančius SARS-CoV-2 variantus ( LOJ), įskaitant Alfa, Beta, Gama, Delta ir Omicron. Šie LOJ turi pagrindines smaigalių ir kitų virusinių baltymų mutacijas, kurios bendrai moduliuoja jų patogenezę, imuninį vengimą ir perduodamumą. 2021 m. lapkričio pabaigoje Pietų Afrikoje pirmą kartą buvo pranešta apie SARS-CoV-2 Omicron BA.1, kuri greitai išplito ir 2022 m. pradžioje pakeitė Deltą kaip vyraujantį SARS-CoV-2 variantą. Omicron BA .1 yra daugiau nei 30 aminorūgščių pokyčių, palyginti su protėvių SARS-CoV-2, dėl kurių atsiranda unikalių virusologinių savybių, įskaitant sumažėjusį patogeniškumą, padidėjusį užkrečiamumą13–17 ir vakcinos sukelto imuniteto vengimą.18– 20 Kadangi Omicron ir jo porūšiai dabar yra vyraujantys SARS-CoV{53}} padermės, svarbu suprasti Omicron infekcijos pasireiškimą nutukusių gyventojų tarpe. Svarbiausia, kad COVID{54}} mRNR vakcinacijos veiksmingumas nutukusiose valstybėse tebėra nevisiškai ištirtas.
Šiame tyrime naudojome DIO peles kaip gyvūnų modelį, kad imituotume Alpha ir Omicron BA.1 pasireiškimą SARS-CoV-2 patogenezės, pakartotinės infekcijos ir COVID-19 mRNR vakcinos tarpininkaujamose situacijose. nutukusių asmenų apsauga. Pirma, nustatėme, kad SARS-CoV{6}} DIO pelėms sukėlė sunkesnių ligų nei liesoms pelėms. Tuo tarpu nustatėme, kad DIO pelių serumą neutralizuojantys antikūnų atsakai ir specifinių virusų T ląstelių interferono atsakai, kuriuos sukėlė virusinė infekcija arba COVID{10}} mRNR vakcinacija, buvo labai susilpnėję DIO pelėms, todėl padidėjo jautrumas pakartotinai užsikrėsti ir mažesnė DIO pelių apsauga nuo COVID-19 mRNR vakcinos, palyginti su liesomis pelėmis. Antra, nors Omicron BA.1 infekcija sukėlė susilpnėjusias liesų pelių ligas, DIO pelėms ji sukėlė sunkią ligą, panašią į Alpha. Trečia, parodėme, kad dviem COVID-19 mRNR vakcinų dozėmis nepavyko sukelti serumą neutralizuojančių antikūnų prieš Omicron BA.1, bet galėjo pagerinti Omicron BA.{17}}sukeltą plaučių pažeidimą DIO pelėms. Plaučių audinių transkriptominiai tyrimai parodė, kad DIO pelių įgimtas imuninis antivirusinis atsakas buvo žymiai padidintas skiepijant, o tai rodo, kad COVID-19 mRNR vakcinacija suteikė DIO pelių apsaugą, nes sustiprino šeimininko įgimtą antivirusinį imunitetą. Iš viso mūsų tyrimas atskleidė svarbių žinių apie SARS-CoV-2 Alpha ir Omicron BA.1 infekciją, pakartotinį užsikrėtimą ir COVID-19 mRNR vakcinaciją DIO pelėse.

cistanche tubulosa - stiprina imuninę sistemą
Spustelėkite čia norėdami pamatyti Cistanche Enhance Immunity produktus
【Klauskite daugiau】 El. paštas:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Metodai
Etikos pareiškimas
Visi eksperimentai su gyvu SARS-CoV-2 buvo atlikti Biologinės saugos lygio-3 įstaigoje Honkongo universiteto (HKU) Mikrobiologijos katedroje pagal standartines darbo procedūras. Visas eksperimentines procedūras su gyvūnais patvirtino HKU Gyvų gyvūnų naudojimo mokymo ir tyrimų metu komitetas pagal CULATR 5786-21 ir atitiktį gyvūnų naudojimo gairėms.
Virusas ir biologinis saugumas
SARS-CoV-2 B.1.1.7/Alpha (GISAID: EPI_ISL_1273444) ir B.1.1.529.1/Omicron BA.1 (GenBank: OM212469)18 buvo izoliuoti iš laboratoriškai patvirtintų COVID{15}} pacientų Honkonge. Alpha ir Omicron BA.1 buvo kultivuojami ir titruojami apnašų tyrimu VeroE6-TMPRSS2 ląstelėse ir prieš naudojimą buvo laikomi –80 ◦C temperatūroje.
Gyvūnai
C57BL/6N pelės buvo gautos iš HKU Lyginamosios medicinos tyrimų centro ir laikomos BSL- 2 gyvūnų laboratorijoje su 12-h intervalu dienos/nakties ciklu.21 Nutukimo indukcija buvo atlikta, kaip aprašyta anksčiau. 6 3 savaičių naujai nujunkytos pelių patelės buvo atsitiktinai suskirstytos į 2 grupes, viena grupė buvo šeriama 45 Kcal % riebiu maistu (D12451, Research Diet Inc, New Brunswick, NJ) 20 savaičių, kad paskatintų dietą. sukeltų nutukusių (DIO) pelių, o kontrolinė grupė buvo šeriama standartiniu granulių maistu, kuriame yra 13,2 Kcal% dietos (PicoLab Rodent Diet 20, LabDiet Code 5053, PMI), kaip liesos pelės. Šiame tyrime naudotos DIO pelės vidutinis kūno svoris buvo 40–50 g, o kontrolinės liesos pelių grupės – 25–30 g.
Ląstelių kultūra ir stimuliacija
Alveoliniai makrofagai (AM) buvo išskirti bronchoalveoliniu plovimu (BAL). Trumpai tariant, po to, kai pelės buvo paaukotos intraperitonine pentobarbitalio injekcija, plaučiai tris kartus plaunami 1 ml vėsiu PBS, kad gautų 3 ml bronchoalveolinio plovimo skysčio (BALF). BALF iš tos pačios grupės pelių buvo sujungti ir centrifuguojami 500 × g 10 minučių 4 ◦ C temperatūroje, kad būtų surinktos nusodintos ląstelės, AM buvo pasėtos 50, 000 ląstelių/šulinėlio tankiu į 96- šulinėlių plokštelės, kultivuotos RPMI 1640 plius 1% penicilino-streptomicino tirpale 37 ◦C temperatūroje drėgnoje 5% CO2 atmosferoje 2 valandas, tada prie auginimo plokštelių galėjo prilipti monosluoksniai AM, neprilipusios ląstelės buvo nuplaunamos iš plokštelių su PBS ir auginamos AM. RPMI 1640 plius 1% penicilino-streptomicino ir 10% galvijų vaisiaus serumo (FBS) su arba be stimuliacijos 1 ug/mL mRNR vakcina, 100 ug/mL poli (I: C) arba 100 ng/mL smaigalio baltymo 24 val. .22 Supernatantai buvo surinkti ELISA tyrimui. Ląstelės buvo kruopščiai nuplaunamos PBS ir surenkamos RNR ekstrahavimui.
Alfa ir Omicron BA.1 iššūkis pelėms
DIO ir liesoms pelėms, kurioms taikoma anestezija ketaminu (100 mg/kg) ir ksilazinu (10 mg/kg)23, į nosį buvo įskiepyta 103 PFU Alpha arba Omicron BA.1, praskiesto 20 ul fosfatiniu buferiniu tirpalu (PBS), kontrolinės pelės. buvo inokuliuoti tokiu pat kiekiu PBS. Užkrėstų pelių kūno svoris ir simptomai buvo stebimi 14 dienų, ligos simptomai buvo susiraukšlėjęs kailis, išlinkusi laikysena ir sunkus kvėpavimas, kiekvienam požymiui buvo suteiktas vienas balas. Pelės buvo nužudytos intraperitonine pentobarbitalio injekcija praėjus 2 ir 4 dienoms po užsikrėtimo (dpi), 3–6 pelės kiekvienoje grupėje buvo eutanazuotos, kad būtų paimti kraujo mėginiai, plaučių ir nosies turbinos audiniai virusologiniam, histopatologiniam ir imunologiniam įvertinimui. Įvertinimams buvo paimti kiekvienos pelės plaučių mėginiai. Kiekvienas duomenų taškas paveikslų skydelyje reiškia vienos pelės rezultatą.
Skiepijimo procedūra
Pelės buvo atsitiktinai suskirstytos į grupes ir joms buvo suteikta dviejų dozių COVID-19 mRNR vakcinacija (BNT162b2, partijos numeris 1B004A, BioNTech, Vokietija) 14-dienų intervalais. Vakcina yra pagrįsta nukleozidais modifikuota mRNR, sudaryta iš lipidų nanodalelių, koduojančių protėvių SARS-CoV-2 viso ilgio. DIO ir liesoms pelėms buvo į raumenis sušvirkšta 50 ul (5 ug) COVID-19 mRNR vakcinos arba įprasto fiziologinio tirpalo kaip kontrolinė.24,25 14 dieną po pirmosios vakcinacijos dozės paėmėme kraujo mėginius ir pateikėme antroji mRNR vakcinos dozė. Praėjus 14 dienų po antrosios dozės, buvo paimti kraujo mėginiai, siekiant įvertinti antikūnų atsaką. Po to pelėms į nosį buvo pasėta 103 PFU Alpha arba Omicron BA.1. Esant 2 dpi, pelės buvo paaukotos intraperitonine pentobarbitalio injekcija, o mėginiai, įskaitant kraujo mėginius, plaučių ir nosies turbinos audiniai, buvo paimti virusologiniam, histologiniam ir imunologiniam įvertinimui. Plaučių audiniai buvo padalinti į tris dalis, kairysis plautis buvo paimtas histologiniam įvertinimui, dešiniojo plaučio uodegos skiltis buvo paimta kaip plaučių homogenatas, o likusi dešiniojo plaučio dalis buvo skirta RNR ekstrakcijai.
SARS-CoV-2 geno kopijų ir infekcinio viruso titro nustatymas plaučių ir nosies turbinos audiniuose
Bendra RNR iš pelių, sergančių Alpha ir Omicron BA.1 infekcija, plaučių ir nosies turbinato (NT) audinių buvo išskirta naudojant MiniBEST Universal RNR ekstrahavimo rinkinį (9766, Takara Bio Inc. Shiga, Japonija). SARS-CoV-2 RNR priklausomos RNR polimerazės (RdRp) geno kopijos buvo kiekybiškai įvertintos naudojant QuantiNova Probe RT-PCR rinkinį (208354, Qiagen). qRT-PGR SARS-CoV-2 RdRp geno kopijoms aptikti ir namų ruošos genui -aktinui normalizuoti buvo atlikta LightCycler 96 sistema (Roche Applied Sciences, Indianapolis, JAV).21 Infekcinio viruso titravimui homogenatai iš plaučiai (dešiniojo plaučio uodegos skiltis) ir NT audiniai, užkrėsti Alpha ir Omicron BA.1, buvo atlikti 50 % audinių kultūros infekcinės dozės (TCID50) tyrimu VeroE6-TMPRSS2 ląstelėse.26 Homogenatai buvo {{ 19}}kartų serijinis skiedimas ir inkubuojamas su VeroE6-TMPRSS2 ląstelėmis 96-šulinėlių plokštelėje 1 val. 37 ◦C inkubatoriuje, supernatantai buvo išmesti ir ląstelės toliau inkubuojamos 37 ◦C temperatūroje 72 °C. h. Buvo pastebėtas citopatinis poveikis (CPE), o 50 % audinių infekcinis titras buvo nustatytas Reed & Munch galutinio taško skaičiavimo metodu.26
Plaučių ir nosies turbinos audinių sekcijų histopatologija, imunohistochemija ir imunofluorescencinis dažymas
Dėl histopatologinių pokyčių buvo stebimas formalinu fiksuotų ir parafiną įterptų audinių pjūvių (kiekvienas po 4 μm) dažymas hematoksilinu ir eozinu (H&E). Plaučių histopatologijos sunkumas buvo įvertintas visiškai užmaskavus27, įvertinus plaučių perkrovą, intersticinę infiltraciją, alveolių infiltraciją ir kraujavimą, ir įvertintas 0–4, kaip aprašyta anksčiau.26 Vertinant buvo naudojami šie kriterijai: 0, normali plaučių dalis; 1, kraujagyslių užsikimšimas, perivaskulinė arba peribronchiolinė infiltracija; 2, be 1 su difuzine alveolių sienelės užgulimu ir infiltracija; 3, oro erdvės infiltracija, eksudacija, lokalizuoto alveolito kraujavimas; 4, pastebėtas difuzinis alveolitas. Imunohistocheminis dažymas buvo atliktas naudojant DAB (3,3′-diaminobenzidino) substrato rinkinį (Vector Laboratories), kaip aprašėme anksčiau.28 Trumpai, ACE2 antigenui nustatyti buvo naudojami ACE2 rekombinantiniai triušio monokloniniai antikūnai (MA5-32307, Invitrogen). naudojamas ir po to skleidžiama spalva naudojant DAB substrato rinkinį. ACE2 baltymas buvo aptiktas hematoksilinu, o tada audinių sekcijos su VectaMount nuolatine tvirtinimo terpe (Vector Laboratories). SARS-CoV-2 antigeno ekspresijai nustatyti plaučių ir NT audinių skaidrės buvo nudažytos vidiniu triušio anti-SARS-CoV-2 nukleokapsidės baltymo (NP) antikūnu, po to antriniu FITC antikūnu. – konjuguotas ožkos anti-triušio IgG (65-6111, Thermo Fisher Scientific, Waltham, MA, JAV). NP balams nustatyti buvo naudojami šie kriterijai. Plaučiai: „Score 0“ – nėra fluorescencinio dažymo signalo; „1 balas“ – tik 1–3 bronchų epitelyje su N antigeno teigiamomis ląstelėmis; „2 balas“ – daugiau nei 3 bronchų epitelis su N antigenui teigiamomis ląstelėmis; „3 balas“ – bronchų epitelis su keliomis teigiamomis ląstelėmis netoliese esančioje alveolėje; „4 balas“ – daugybiniai židiniai arba didelis alveolių plotas su N antigenui teigiamomis ląstelėmis. NT: „Score 0“ – nėra fluorescencinio dažymo signalo; „1 balas“ – kelios N antigenui teigiamos ląstelės, išsibarsčiusios epitelyje; „2 balas“ – epitelis, rodantis nuolat teigiamą N antigeno židinį gretimose ląstelėse; „3 balas“ – daugiau N antigeno teigiamų epitelio židinių, paskirstytų kitoje srityje. Vaizdai buvo užfiksuoti naudojant Olympus BX53 pusiau motorizuotos fluorescencijos arba šviesaus lauko mikroskopą su OLYMPUS CellSense standartine programine įranga.

cistanche tubulosa - stiprina imuninę sistemą
RNR išskyrimas ir realaus laiko atvirkštinės transkripcijos polimerazės grandininė reakcija
Bendra RNR buvo išskirta iš audinių homogenatų (kaukolės, vidurinės ir papildomos skiltys buvo paimtos plaučiams), o cDNR atvirkštinė transkripcija buvo atlikta naudojant MiniBEST universalų RNR ekstrakcijos rinkinį ir RT reagentų rinkinį (RR036A Takara Bio Inc.) pagal gamintojo nurodymus. . Citokinų, chemokinų ir interferonų ekspresijos lygiai buvo nustatyti naudojant qRT-PCR su specifiniais pradmenimis (papildoma lentelė S1), naudojant SYBR Premix Ex Taq II rinkinį (RR820A, Takara Bio Inc.). Kiekvieno geno reikšmės buvo normalizuotos naudojant namų ūkio geną -aktiną ir pateiktos kaip 2-ΔCt, kaip aprašėme anksčiau.28,29
Su fermentais susijęs imunosorbentinis tyrimas (ELISA)
SARS-CoV-2 nukleoproteinas (N), smaigalio baltymo receptorių surišimo domenas (RBD) ir inaktyvuotas SARS-CoV-2 buvo padengtas 96-šulinėlių imunoblastais (Nunc-Immuno Modules; Nunc A /S, Roskilde, Danija) 0,05 M NaHCO3 ir inkubuojamas 4 ◦C temperatūroje per naktį. Serumo mėginiai buvo 2-kartais skiedžiami ir supilami į padengtą plokštelę, inkubuojami 4 ◦C temperatūroje 1 valandą, po to pridedami su krienų peroksidaze (HRP) konjuguoti antriniai antikūnai (triušio anti-pelės IgG, ožkos anti-pelės IgG1, IgG2a, IgG2b, ab6728, ab98693, M32307, M32507, Abcam ir Invitrogen) 37 ◦C temperatūroje 1 val. Spalva ryškinama 3,3′,5,5′-tetrametilbenzidino tirpalu (#N301, Thermo Fisher Scientific) 37 ◦C temperatūroje 15 min. ir sustabdyta H2SO4. Optinio tankio (OD) reikšmės buvo nuskaitytos esant 450 nm. Antikūnų titrai buvo nustatyti pagal ribinę OD vertę, kuri buvo nustatyta ties vidutiniu neužkrėsto serumo OD visais praskiedimais, pridėjus 3 standartinius nuokrypius, o didžiausias skiedimas, kurio OD vertė viršija ribą, buvo nustatytas kaip antikūnų titras. serumas.30 IFN- , IFN- , Albumino ir hemoglobino koncentracijos buvo nustatytos naudojant pelės IFN- (Invitrogen, JAV), IFN- (R&D sistemos, JAV), albumino ir hemoglobino (Abcam, Kembridžas, JK) ELISA rinkinį, atlikus gamintojo instrukcijas.
Mikroneutralizacijos (MNT) tyrimas
Serumo mėginiai buvo serijiniu būdu skiedžiami 2-kartu, pradedant nuo 1:10 PBS ir maišomi su 100 TCID 50 SARS-CoV-2 1 valandą 37 ◦C temperatūroje, mišinys supilamas į iš anksto pasėtą VeroE. 6-TMPRSS2 ląstelės 96-šulinėlių plokštelėje 37 ◦C temperatūroje 72 val. Buvo stebimas CPE ir neutralizuojančių antikūnų titrai buvo nustatyti kaip didžiausias serumo praskiedimas, visiškai slopinantis citopatinį poveikį.
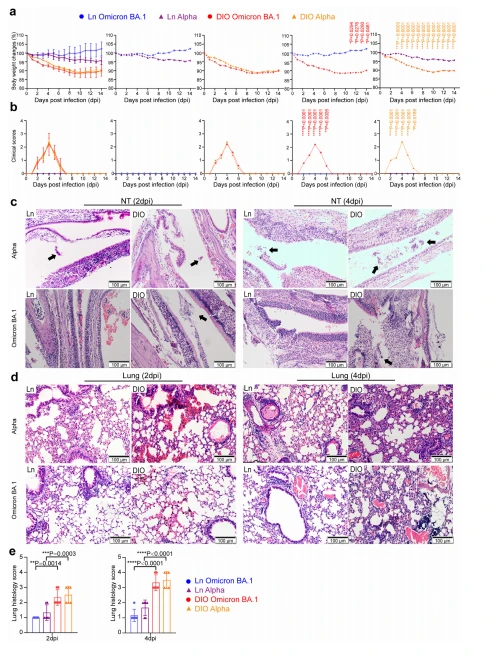
1 pav. SARS-CoV-2 Alpha ir Omicron BA.1 sukelia sunkesnes ligas DIO pelėms nei liesoms pelėms.
Su fermentais susietos imuninės dėmės (ELISpot) tyrimas
Virusui specifinės IgG gaminančios ląstelės buvo aptiktos pasėjus vienos ląstelės (2,5 × 10⁵ ląstelių viename duobutėje) plaučių ir blužnies audinių suspensiją į ELISpot plokštelę su inaktyvuotu SARS-CoV-2 (5 ug/mL) esant 37 temperatūrai. ◦C 48 val. IgG gaminančios ląstelės buvo nustatytos naudojant šarminės fosfatazės (AP) konjuguotą ožkos anti-pelės IgG antikūną (62-6522, Invitrogen).31 Virusui specifinių IFN gaminančių ląstelių aptikimui 2,5 × 10⁵ ląstelių vienoje duobutėje Plaučių ir blužnies audinių suspensija buvo inkubuojama IFN-ELISpot plokštelėje stimuliuojant SARS-CoV-2 UBR peptidų telkiniu ir N baltymu 37 ◦C temperatūroje 48 val., IFN gaminančios ląstelės buvo nustatytos naudojant pelės IFN-ELISpot BASIC. rinkinys (3321-2A, Mabtech, Inc., Stokholmas, Švedija) pagal gamintojo instrukcijas.32
RNR sekos nustatymas ir duomenų analizė
Bendra DIO ir liesų pelių plaučių audinių ląstelių RNR (n Didesnė arba lygi 3 grupėje) buvo išskirta naudojant NucleoSpin RNA Kit (740955.250, MACHEREY-NAGEL, Duren, Vokietija) . DNR išeikvota ir išgryninta RNR buvo naudojama dvigrandės (ds) cDNR bibliotekai sukurti naudojant MGIEasy RNA Library paruošimo reagentų rinkinį (MGI, Shenzhen, Kinija) pagal standartinį protokolą. Sekos duomenys buvo filtruojami naudojant greitą v0.20.1, kad būtų pašalintas adapteris ir prastos kokybės nuskaitymai.33 Ribosominės RNR (rRNR) nuskaitymai buvo filtruojami naudojant URMAP v1.0. 1480 (Edgar, 2020) ir 34 HISAT2 v2.2.0 buvo naudojami norint susieti rodmenis su pelės etaloniniu genomu (GRCm38/ENSEMBL 84).35 Lygiavimo failas buvo naudojamas surinkti nuorašus, įvertinti jų gausą ir aptikti skirtingą raišką. genų, genų ekspresijos lygiai buvo kiekybiškai įvertinti naudojant StringTie v2.1.5.36 Pagrindinių komponentų analizė (PCA) buvo atlikta naudojant R v4.0. Skirtingai išreikšti genai (DEG) ir nustatyti remiantis genų skaičiumi naudojant DESeq2 v3.15.37 DEG skirtingose gydomose grupėse buvo identifikuoti naudojant clusterProfile, kurio slenkstis yra |log2FC| > 1, o FDR reikšmė < 0,05, ir naudojama sodrinimo analizei, apimančiai genų ontologiją (GO), Kioto genų ir genomų kelio enciklopediją (KEGG).38 Visi pelės genomo genai buvo naudojami kaip sodrinimo fonas. ImmuCellAI_Pelė buvo naudojama imuninių ląstelių gausai pagal RNAseq duomenis nustatyti.39
Statistinė analizė
Duomenys reiškia vidurkius ir standartinius nuokrypius. Statistiniai skirtumai tarp dviejų grupių buvo įvertinti Stjudento t-testu naudojant GraphPad Prism 8. Statistiniai skirtumai tarp trijų ar daugiau grupių buvo įvertinti naudojant vienpusį arba dvipusį ANOVA naudojant GraphPad Prism 9. Skirtumai buvo laikomi statistiškai reikšmingais, kai p < { {5}}.05. Skaičiai ir grafikai rankraštyje buvo parengti naudojant GraphPad Prism 8, Adobe Illustrator arba BioRender.com.
Reagento patvirtinimas
Tyrime naudojami antikūnai buvo patvirtinti komercinio šaltinio, iš kurio jie buvo įsigyti. Išsamią informaciją apie tyrime naudotus reagentus galima rasti papildomų duomenų reagentų patvirtinimo faile (papildoma S2 lentelė).
Finansuotojų vaidmuo
Finansavimo šaltiniai neturėjo jokio vaidmens kuriant tyrimą, renkant duomenis, analizuojant ar interpretuojant ar rašant ataskaitą.

cistanche nauda vyrams - stiprina imuninę sistemą
Rezultatai
SARS-CoV-2 Alfa ir Omicron BA.1 sukelia sunkesnes ligas DIO pelėms nei liesoms pelėms
Norint suprasti SARS-CoV-2 patogeniškumą nutukimo kontekste, DIO ir liesos pelės buvo pasėtos 103 PFU Omicron BA.1 (B.1.1.529.1) arba Alpha (B) .1.1.7) intranazaliniu būdu. Omicron BA.1 ir Alpha turi N501Y pakaitalą, leidžiantį užkrėsti laukinio tipo peles.40,41 14-dienos ligos eigoje stebėjome lėtą, bet nuolatinį mažėjimą kūno svorio alfa infekuotoms liesoms pelėms, kurių vidutinis kūno svoris sumažėjo 5 % esant 14 dpi (1a pav.). Priešingai, mes pastebėjome, kad Omicron BA.{23}}užkrėstų liesų pelių kūno svoris vidutiniškai padidėjo 1,5 %, o tai rodo, kad Omicron BA.1 patogeniškumas liesoms pelėms buvo žymiai susilpnėjęs (1a pav.), o tai yra remiantis naujausiais mūsų ir kitų atliktais tyrimais.14,42 Tačiau Alfa ir Omicron BA infekcija.1 lėmė smarkesnį dietos sukeltų nutukusių (DIO) pelių kūno svorio kritimą, kuris buvo maždaug 12 % esant 9 dpi. su pradiniu kūno svoriu (100 %) esant 0 dpi (1a pav.). Įdomu tai, kad nors buvo aiškus Alpha- ir Omicron BA.{36}}infekuotų liesų pelių (14 dpi: –5,0 %, palyginti su +1,5 %) vidutinio kūno svorio pokyčio skirtumas, kūno svoris Alpha- ir Omicron BA praradimas.{43}}infekuotos DIO pelės buvo iš esmės tokios pačios (14 dpi: –11,1 %, palyginti su –11,4 %) (1a pav.). Remiantis kūno svorio matavimais, Alpha ir Omicron BA.1 infekcija sukėlė panašius klinikinius simptomus DIO pelėms, įskaitant susiraukšlėjusį kailį, sulenktą nugarą ir apsunkintą kvėpavimą, kurio didžiausias dažnis buvo 4 dpi (1b pav.), o mes nepastebėjome jokių ligos požymis liesoms pelėms po Alpha arba Omicron BA.1 infekcijos. Toliau įvertinome viršutinių ir apatinių kvėpavimo takų audinių histologinius pokyčius. Mock užkrėstas pelės nosies turbinate (NT) ir plaučių audinių buvo parodyta kaip kontrolė (papildomas pav. S1). Pastebėjome nedidelį viruso sukeltą epitelio sunaikinimą ir uždegiminę infiltraciją Alpha ir Omicron BA.{56}}infekuotų liesų pelių NT 2 dpi dažniu. DIO pelių, užkrėstų Alpha arba Omicron BA.1 2 dpi dažniu, NT skyriuose epitelio deskvamacija ir imuninė infiltracija buvo ryškesni, palyginti su liesomis pelėmis (1c pav.). Esant 4 dpi greičiui, alfa infekuotoms liesoms pelėms buvo aptiktas lengvas NT epitelio sunaikinimas su keliomis luminalinių ląstelių nuolaužomis, o Omicron BA.{63}}užkrėstų liesų pelių NT atrodė palyginti nepažeista. Tačiau 4 dieną po Alpha arba Omicron BA.1 infekcijos mes ir toliau aptikome sunkų epitelio sunaikinimą, luminalines šiukšles ir poodinių imuninių ląstelių infiltraciją DIO pelių NT skyriuose (1c pav.). Liesų pelių plaučių audiniuose Alfa infekcija sukėlė lokalizuotą intersticinį uždegimą ir nedidelį alveolių kapiliarų užsikimšimą esant 2 ir 4 dpi, o Omicron BA.1 infekcija sukėlė plaučių intersticinį uždegimą esant 2 dpi, bet iš esmės išnyko esant 4 dpi (1 pav.). 1d). Priešingai, po Alpha arba Omicron BA.1 infekcijos DIO pelių plaučių audiniuose buvo pastebėti sunkesni alveolių histologiniai pažeidimai, kurie pasireiškė kaip stiprus plaučių kraujagyslių užsikimšimas esant 2 dpi. Alveolių maišeliuose, esant 4 dpi, buvo pastebėta padidėjusi peribronchiolinių ir perivaskulinių imuninių ląstelių infiltracija, taip pat imuninės ląstelės ir skysčių eksudatai (1d pav.). Albumino koncentracija bronchoalveolinio plovimo skystyje DIO pelėms buvo žymiai didesnė nei liesose pelėse 4 dieną po Alfa infekcijos, o tai rodo padidėjusį alveolių kapiliarų pralaidumą SARS CoV{79}} infekuotoms DIO pelėms (papildomas S2 pav.). Remiantis šiais duomenimis, pusiau kiekybinis plaučių audinių histologinis įvertinimas parodė, kad Omicron BA.1 ir Alpha infekcija DIO pelėms sukėlė sunkesnę plaučių histopatologiją nei liesoms pelėms (1e pav.). Apskritai šie rezultatai rodo, kad SARS-CoV{85}} infekcija DIO pelėms sukelia sunkesnius ligos pasireiškimus nei liesoms pelėms. Svarbu tai, kad nors Omicron BA.1 yra mažiau patogeniškas nei alfa liesoms pelėms, du SARS CoV-2 variantai yra patogeniškesni ir sukelia panašias ligas DIO pelėms.
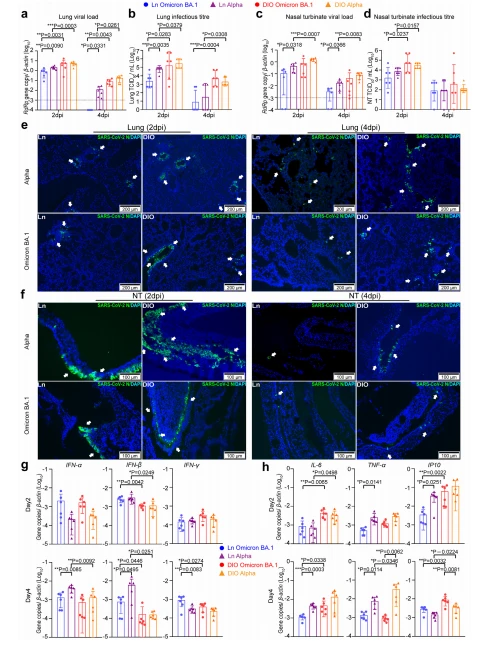
2 pav. SARS-CoV-2 dauginasi efektyviau DIO pelėse nei liesose pelėse.
SARS-CoV-2 DIO pelėse dauginasi efektyviau nei liesose pelėse
Toliau paklausėme, ar Omicron BA.1 ir Alpha veiksmingiau replikuojasi DIO pelių kvėpavimo audiniuose, palyginti su liesomis pelėmis. Mes nustatėme, kad tiek Alpha, tiek Omicron BA.1 DIO pelių plaučių audiniuose dauginasi iki didesnio lygio nei liesose pelėse esant 2 ir 4 dpi (2a ir b pav.). Remiantis ankstesniais pranešimais, liesų pelių plaučių audiniuose Omicron BA.1 replikavosi iki mažesnio lygio nei Alfa. Visų pirma, Omicron BA.1 infekcinis titras buvo 26.{8}} ir 3.{10}}kartai mažesnis nei Alpha, esant atitinkamai 2 ir 4 dpi. Priešingai, Omicron BA.1 ir Alpha replikavosi iki panašaus lygio DIO pelių plaučių audiniuose, matuojant RdRp geno kopijas ir infekcinius titrus (2a ir b pav.). Be to, mes taip pat aptikome panašų viruso RdRp geno ir infekcinio titro modelį NT audiniuose, kur Omicron BA.1 ir Alpha replikavosi iki panašių lygių DIO pelėms, bet ne liesoms pelėms (2c ir d pav.). Imunofluorescenciniu dažymu aptikome ryškesnę viruso nukleokapsidės (N) ekspresiją DIO pelių, užsikrėtusių Omicron BA.1 arba Alpha, plaučiuose ir NT audiniuose, palyginti su liesomis pelėmis, esant 2 ir 4 dpi dažniui (2e ir f pav. bei papildomas). S3 pav.). Tuo pačiu metu kiekybiškai įvertinome pagrindinių interferonų (IFN) ir priešuždegiminių citokinų ekspresiją plaučių audiniuose. Mūsų rezultatai parodė, kad Omicron BA.1 ir Alpha sukėlė žymiai mažesnį IFN kiekį DIO pelėse, palyginti su jų liesomis kolegomis (2g pav. ir papildomas S4 pav.). Priešingai, priešuždegiminius citokinus, įskaitant IL-6 ir IP-10, DIO pelėms suaktyvino didesnis kiekis Omicron BA.1 ir Alpha infekcijos, palyginti su liesomis pelėmis (2h pav.). Be to, įvertinome pradinę ACE2 ir TMPRSS2 ekspresiją neužkrėstose liesose ir DIO pelėse ir nustatėme, kad liesose ir DIO pelėse ACE2 ir TMPRSS2 buvo išreikšti panašiais lygiais. Tačiau imunohistocheminis dažymas, atliktas naudojant ACE2 antigeno ekspresiją, nustatė didesnį ACE2 intensyvumą neinfekuotų DIO pelių bronchų ir alveolių epitelyje, palyginti su liesomis pelėmis (papildomas S5 pav.). Kartu šie radiniai rodo, kad sutrikusi IFN ekspresija ir didesnė ACE2 ekspresija DIO pelėse gali prisidėti prie didesnės viruso replikacijos ir padidėjusio priešuždegiminio atsako, dėl kurio DIO pelėse gali atsirasti sunkesnių audinių pažeidimų.

3 pav. Adaptyvusis imunitetas, įgytas nuo ankstesnės SARS-CoV-2 infekcijos, neefektyviai apsaugo DIO peles. a
Prisitaikantis imunitetas, įgytas nuo ankstesnės SARS-CoV-2 infekcijos, neefektyviai apsaugo DIO peles
Be to, norint suprasti adaptyvaus imuniteto apsauginį veiksmingumą nuo pakartotinio užsikrėtimo nutukimo būsenoje, sveikstančios DIO pelės ir liesos pelės buvo pakartotinai gydomos 103 PFU alfa 28 dieną po pirminės infekcijos, o mėginiai buvo paimti praėjus 2 dienoms po pakartotinio užsikrėtimo. dpr) (3a pav.). Išanalizavome IgG antikūną prieš SARS-CoV-2 antigeną serumo mėginiuose, paimtuose 14 dieną po pirminės Alfa infekcijos, ir nustatėme, kad IgG titras prieš SARS CoV-2 N ir smaigalio receptorius surišantis domenas ( RBD) buvo žymiai mažesni DIO pelėms nei liesoms pelėms 1.9- (p=0.0128) ir 3.4-kartais (p=0.0362) , atitinkamai (3b pav.). Be to, DIO pelių viruso surišimo bendrojo IgG ir potipio IgG1, IgG2a ir IgG2b titras buvo žymiai mažesnis, palyginti su liesomis pelėmis (3b pav.). 1:10–1:20 serumo neutralizavimo titras buvo aptiktas 5 iš 6 liesų pelių, bet nebuvo aptiktas nė vienoje iš 6 DIO pelių (3b pav.), o tai rodo, kad DIO pelių adaptyvus imuninis atsakas po SARS CoV-2 infekcija. Esant 2dpr, viruso RdRp geno kopija buvo lengvai aptikta iš visų NT audinių ir 3/6 (50 %) pakartotinai užkrėstų DIO pelių plaučių audinių (3c pav.), tuo tarpu iš NT ir plaučių viruso RdRp geno kopija nebuvo paimta. pakartotinai paveiktų liesų pelių audinius. Nuosekliai mes dažnai aptikdavome virusinį N baltymą DIO pelių NT epitelyje ir plaučių audiniuose, bet ne liesose pelėse (3d pav.). Histologiniai tyrimai atskleidė epitelio sunaikinimą NT audiniuose, taip pat alveolių sienelių užsikimšimą, peribronchiolių infiltraciją ir lokalizuotą alveolių kraujavimą DIO pelių, bet ne liesų pelių plaučių audiniuose (3e pav.). Toliau įvertinome imuninės atminties atsakų atšaukimą po pakartotinio užsikrėtimo liesose ir DIO pelėse, nustatėme, kad virusui specifinių IFN ir IgG gaminančių ląstelių DIO pelių plaučių ir blužnies audiniuose buvo žymiai mažiau nei liesų pelių. 2dpr (3f ir g pav.). Svarbu tai, kad 2 dieną po pakartotinio Alfa užsikrėtimo DIO pelių serume nepavyko aptikti neutralizuojančių antikūnų prieš alfa titro, o 4/6 (66,7 %) pakartotinai užsikrėtusių liesų pelių neutralizuojantis titras buvo 1 :10 (3h pav.). Taigi, mūsų išvados rodo, kad DIO pelės yra jautresnės pakartotinei infekcijai dėl nepakankamai pritvirtintų adaptyviųjų B ląstelių ir T ląstelių imuninių atsakų po SARS-CoV{60}} infekcijos.

4 pav. COVID-19 mRNR vakcinacija suteikia mažesnę apsaugą nuo alfa infekcijos DIO pelėms dėl susilpnėjusio adaptyvaus imuninio atsako. a
COVID-19 mRNR vakcinacija suteikia mažesnę apsaugą nuo alfa infekcijos DIO pelėms dėl susilpnėjusio adaptyvaus imuninio atsako
Norėdami ištirti DIO pelių apsaugos veiksmingumą po imunizacijos mRNR vakcinomis, DIO ir liesoms pelėms į raumenis suleidome dviejų dozių COVID-19 mRNR vakcinacijos režimą, o po to praėjus 14 dienų po padidinimo buvo atliktas alfa užkrėtimas, kaip parodyta Fig. 4a. NT audiniuose viruso RdRp geną aptikome 3/6 (50%), o infekcinį titrą – 2/6 (33,3%) vakcinuotų liesų pelių, o viruso RdRp geną ir infekcinį titrą aptikome visose vakcinuotose. DIO pelėms (4b pav.), o tai rodo, kad proveržio infekcija po vakcinacijos DIO pelėms pasireiškė daug lengviau, palyginti su liesomis pelėmis. Remiantis ankstesniais pranešimais, kad siūlomos vakcinacijos suteikia geresnę apatinių kvėpavimo takų apsaugą, palyginti su viršutiniais kvėpavimo takais žmonių ir gyvūnų modeliuose, 43, 44, mes neaptikome viruso geno kopijos ar infekcinio viruso nė vieno iš vakcinuotų asmenų plaučių audinių. liesos pelės (4c pav.). Priešingai, viruso RdRp geną aptikome 3/6 (50%) ir infekcinį titrą 4/6 (66,7%) DIO pelių plaučių audinių. Histologiškai pastebėjome platų epitelio sunaikinimą vakcinuotų DIO pelių NT audiniuose po užkrėtimo alfa virusu, o mažesnis NT audinių pažeidimo laipsnis buvo pastebėtas vakcinuotoms liesoms pelėms (4d pav.). Vakcinuotų DIO pelių plaučių audiniuose aptikome perkrovą ir infiltraciją alveolių erdvėje kartu su alveolinio kraujavimo židiniais po alfa infekcijos, o vakcinuotų liesų pelių plaučių audiniuose šių histopatologinių pažeidimų iš esmės nebuvo (4e pav.). Remiantis šiais duomenimis, COVID-19 mRNR vakcinacija sumažino SARS-CoV- 2 N ekspresiją tiek liesose, tiek DIO pelėse NT audiniuose (4f pav.). Plaučių audiniuose viruso N signalai buvo aptikti tik vakcinuotoms DIO pelėms, bet ne vakcinuotoms liesoms pelėms (4g pav.). Tada mes nustatėme, kad virusui specifinių IFN ir IgG gaminančių ląstelių skaičius vakcinuotų DIO pelių blužnies audiniuose buvo žymiai mažesnis, palyginti su vakcinuotomis liesomis pelėmis 2 dieną po Alfa infekcijos (4h pav.). Svarbu tai, kad mikroneutralizacijos tyrimas aptiko neutralizuojantį antikūną prieš alfa tik DIO pelių serume praėjus 14 dienų po antrosios vakcinacijos dozės ir 2 dienas po viruso užkrėtimo, tačiau lygis buvo 2.{36}}kartai (p < 0,0001) ir 21 .8- raukšlės (p=0.0053) yra atitinkamai mažesnės nei liesų pelių (4i pav.). Visi šie rezultatai rodo, kad DIO pelių adaptyvus antikūnų atsakas į COVID-19 mRNR vakcinaciją yra sutrikęs.
COVID-19 mRNR vakcinacija pagerina plaučių pažeidimą, kurį sukėlė Omicron BA.1 užkrėtimas DIO pelėms, nesant aptinkamų neutralizuojančių antikūnų
Tada paklausėme, kiek COVID{{0}} mRNR vakcinacija apsaugo DIO peles nuo SARS-CoV-2 Omicron BA.1. Šiuo tikslu pirmiausia ištyrėme serumo neutralizuojančių antikūnų titrą prieš Omicron BA.1 ir nustatėme žemą titrą liesose pelėse praėjus 14 dienų po padidinimo, o DIO pelėms neutralizuojančių antikūnų titro nebuvo aptikta net po dviejų vakcinacijos COVID dozių. 6}} mRNR pastiprinimas arba praėjus 2 dienoms po Omicron BA.1 infekcijos (5a ir b pav.), o tai rodo, kad DIO pelių vakcinacija sukėlė mažai kryžminių antikūnų prieš Omicron BA.1. Tada DIO ir liesos pelės buvo užkrėstos 103 PFU Omicron BA.1 intranazaliniu būdu praėjus 14 dienų po sustiprintos vakcinacijos (5a pav.). NT audiniuose vakcinacija COVID-19 mRNR nežymiai sumažino Omicron BA.1 replikaciją ir infekcinį titrą liesose pelėse, bet neturėjo jokio poveikio DIO pelėms, palyginti su neskiepytomis kontrolinėmis grupėmis (5c pav.). Įdomu tai, kad vakcinacija COVID-19 mRNR reikšmingai sumažino Omicron BA.1 replikaciją DIO pelių plaučių audiniuose, palyginti su jų neskiepytomis kontrolinėmis grupėmis, tačiau ne tokia veiksminga kaip visiškas Omicron BA.1 slopinimas skiepytų liesų pelių plaučių audiniuose. pelėms (5d pav.). Tiksliau, Omicron BA.1 RdRp geno kopija buvo sumažinta 867-kartais (p=0.0087) ir infekcinis titras 7979.{27}}kartais (p < 0.0001) vakcinuotoms DIO pelėms. . Atsižvelgiant į pirmiau nurodytus virusologinius duomenis, COVID-19 mRNR vakcinacija buvo mažiau veiksminga mažinant Omicron BA.1 antigeno ekspresiją liesų ir DIO pelių NT audiniuose, tačiau sumažino Omicron BA.1 antigeno ekspresiją liesų ir DIO pelių plaučių audiniuose. (5e pav.). Esant 2 dpi, Omicron BA.1 infekcija sukėlė tam tikro laipsnio perkrovą ir infiltraciją alveolių erdvėje, kartu su kraujavimu iš plaučių ir epitelio pažeidimu nevakcinuotoms DIO pelėms, kurios sumažėjo vakcinavus COVID-19 mRNR (5f pav.). Svarbu tai, kad mes nustatėme, kad IFN ir IFN koncentracija vakcinuotų DIO pelių plaučių audiniuose buvo žymiai padidinta, palyginti su nevakcinuotomis pelėmis, esant 2 dpi po Omicron BA.1 užkrėtimo, o serume neutralizuojantis antikūnas liko neaptinkamas paskiepytoje. DIO pelės (5g pav.). Bendras ligos sunkumas pagal kūno svorio pokyčius parodė, kad COVID-19 mRNR vakcinacija sumažino maksimalų DIO pelių kūno svorio sumažėjimą iki 9%, palyginti su 13% neskiepytų DIO pelių (papildomas S6 pav.). Apibendrinant, šie rezultatai rodo, kad nepaisant to, kad suaktyvinamas neaptinkamas antikūnų atsako lygis, vakcinacija nuo COVID{48}} mRNR gali sustiprinti įgimtą antivirusinį atsaką, kad būtų pagerintas Omicron BA1-sukeltas plaučių audinių pažeidimas DIO pelėms.

5 pav. COVID-19 mRNR vakcina pagerina plaučių pažeidimą, nesant neutralizuojančių antikūnų atsako Omicron BA.{2}}infekuotose DIO pelėse. a
COVID-19 mRNR vakcinacija padidina antivirusinį atsaką DIO pelių plaučiuose
Kad geriau suprastume imuninį atsaką DIO pelių, paskiepytų COVID-19 mRNR, plaučių audiniuose, 2-ą dieną po Omicron BA.1 infekcijos paėmėme pelių plaučių mėginius ir ištyrėme jų transkripto profilius (6a pav. ir papildomas pav.). S7). Įdomu tai, kad pastebėjome pastebimą genų, dalyvaujančių keliuose, susijusiuose su įgimtais antivirusiniais atsakais, praturtėjimą, įskaitant „ląstelių atsaką į IFN ir IFN“ ir „teigiamą IFN ir IFN gamybos reguliavimą“ vakcinuotų DIO pelių plaučių audiniuose. 6b pav.). Imuninių genų rinkinių analizė taip pat atskleidė, kad vakcinuotose DIO pelėse buvo didžiausias M1 makrofagų gausumas tarp visų įvertintų grupių (6c pav.). Norėdami įvertinti, ar COVID-19 mRNR vakcina padidino antivirusinį interferono atsaką alveolių makrofaguose, išskyrėme alveolinius makrofagus iš liesų pelių ir DIO pelių ir stimuliavome mRNR vakcina (7a pav.). Mes nustatėme, kad pelių alveolių makrofagų stimuliavimas mRNR vakcina in vitro sukėlė reikšmingą RIG-I, MDA5, STAT1, STAT2, ISG15, IFIT3 ir OAS3 reguliavimą, o tik DIO pelių alveoliniai makrofagai žymiai padidino IFN gamybą mRNR. ir baltymų kiekį (7b ir c pav.). Šie radiniai parodė skirtingą DIO pelių ir liesų pelių alveolių makrofagų atsako profilį. Tada iš skiepytų arba nevakcinuotų liesų ir DIO pelių išskyrėme pelių alveolių makrofagus, po to ląsteles stimuliavome poli (I:C) arba SARS-CoV-2 smaigalio baltymu (7d pav.). In vitro stimuliacija poli (I: C) dar labiau padidino įgimtų su imuniniu atsaku susijusių genų ekspresiją alveoliniuose makrofaguose iš vakcinuotų liesų ir DIO pelių. Įdomu tai, kad interferonu stimuliuojami genai, įskaitant ISG15, IFIT3 ir OAS3, buvo labiau sureguliuoti DIO pelių alveoliniuose makrofaguose, užpildytuose vakcina, lyginant su liesomis pelėmis (7e pav.). Lygiagrečiai, rekombinantinis SARS-CoV-2 smaigalio baltymo stimuliavimas padidino RIG-I, TLR3, IL-6, TNF-, IFN-, IFN-, IRF7 ir STAT2 mRNR ekspresiją vakcinoje. gruntuoti DIO pelių, bet ne liesų pelių alveoliniai makrofagai (7g pav.). Svarbu tai, kad IFN gamyba smarkiai padidėjo vakcinuotų DIO pelių alveoliniuose makrofaguose, reaguojant į poli (I: C) arba S baltymų stimuliavimą (7f ir h pav.). Visi šie rezultatai rodo, kad vakcinacija nuo COVID-19 mRNR gali atkurti įgimtą antivirusinį atsaką DIO pelių plaučiuose, moduliuodama su I tipo interferonu susijusių genų ekspresiją alveolių makrofaguose.

6 pav. COVID-19 mRNR vakcinacija padidina antivirusinį atsaką DIO pelių plaučiuose. a
Diskusija
Nutukimas yra susijęs su paūmėjusiomis uždegiminėmis reakcijomis ir imuninės sistemos sutrikimu, todėl COVID{0}} pacientams kyla didelė sunkumo ir hospitalizavimo rizika.45 Lieka neaišku, kaip šis lėtinis žemo laipsnio uždegimas ir imuninių atsakų disfunkcija. moduliuoti SARS-CoV-2 infekcijos eigą. Norint ištirti SARS-CoV-2 patogenezę ir įvertinti COVID-19 mRNR vakcinacijos veiksmingumą nutukusiems asmenims, skubiai reikalingi tinkami mažų gyvūnų modeliai, imituojantys COVID-19 pacientų klinikinius požymius. . Tačiau protėvių SARS-CoV-2 neužkrečia laukinio tipo laboratorinių pelių, nes protėvių smaigalio UBR efektyviai nesijungia su pelių ACE2.21, 40, 41 Įdomu tai, kad neseniai atsirado SARS-CoV-2 variantų. , įskaitant Alfa (B.1.1.7), Beta (B.1.351), Gamma (P.1) ir Omicron BA.1 (B.1.1.529.1), įgijo N501Y mutaciją smaigalyje, kuri leidžia kryžminį SARS-CoV-2 rūšių perdavimas laukinio tipo pelėms.41,46–50 Šiame tyrime naudojame dietos sukeltą nutukusių laukinio tipo pelių modelį, kad ištirtume SARS-CoV-2 Alfa ir Omicron BA.1 patogenezė, pakartotinė infekcija ir vakcinacija.

cistanche tubulosa - stiprina imuninę sistemą
Mūsų rezultatai parodė, kad Omicron BA.1 infekcija yra ne tokia sunki kaip Alfa liesoms pelėms, atsižvelgiant į kūno svorio pokyčius, viruso kiekį, viruso titrą, plaučių uždegimą sukeliančius žymenis ir histopatologinius duomenis. Šie rezultatai atitinka naujausius pranešimus, kuriuose nustatytas mažesnis Omicron BA.1 infekcijos lygis, palyginti su ankstesniais SARS-CoV-2 variantais gyvūnų modeliuose.14,42 Padidėjęs SARS-CoV{7} } infekcija DIO pelėms nei liesoms pelėms atitinka naujausių tyrimų, atliktų su dieta sukeltų nutukusių pelių ir žiurkėnų, rezultatus.51–53 Įdomu tai, kad mes atskleidėme, kad Omicron BA.1 replikavosi iki panašaus lygio, palyginti su Alfa DIO pelėse. dėl to DIO pelėse Omicron BA.1 ir Alpha patogeniškumas yra panašus. Konkrečiai, tipinius priešuždegiminius citokinus, įskaitant IP-10 ir IL-6, stipriai sukėlė Omicron BA.1 infekcija DIO pelėms, o tai rodo padidėjusį uždegiminį pažeidimą ir sergamumą.54 Tuo tarpu antivirusinio IFN gamyba plaučių audiniuose. DIO pelių skaičius buvo žymiai mažesnis nei liesų pelių, sergančių Alpha ir Omicron BA.1 infekcija. Šie rezultatai rodo, kad Omicron BA.1 infekcija DIO pelėms gali sukelti sunkią ligą, panašią į Alpha. Šiuo metu nevisiškai suprantama, kaip nutukimas prisideda prie sunkių COVID ligų{18}}. Padidėjęs leptino kiekis yra būdingas nutukimo požymis, reguliuojantis medžiagų apykaitą, Jak/STAT ir Akt signalizacijos kelius ir moduliuojančias T ląstelių funkcijas, o tai gali prisidėti prie sunkių pasekmių.55,56 Antikūnų sukeltas humoralinis imunitetas yra būtinas šeimininko apsaugai. 57–59, o optimaliam viruso pašalinimui iš SARS-CoV-2-infekuotų pelių taip pat reikia CD4+ ir CD8+ T ląstelių atsako.60 Šiame tyrime aptikome žymiai mažesnį B ląstelių kiekį ir T ląstelių atsakas iš DIO pelių, palyginti su liesomis pelėmis, o tai gali prisidėti prie padidėjusio DIO pelių jautrumo pakartotinei infekcijai. Pagrindinis sumažėjusio B ląstelių ir T ląstelių atsako mechanizmas DIO pelėse lieka neišsamiai ištirtas, bet gali būti susijęs su dendritinių ląstelių funkcionalumo pažeidimu, kaip buvo atskleista ankstesniuose gripo viruso tyrimuose.61–63
Nepaisant sėkmingos COVID{0}} mRNR vakcinacijos, kuri labai veiksmingai apsaugo nuo SARS-CoV-2 sunkių ligų, SARS-CoV-2 variantų imuninės sistemos vengimas gali kelti pavojų vakcinos veiksmingumui.43 Mūsų DIO pelės modelyje su dviejų dozių imunizacijos režimu neutralizuojantys antikūnai liesose pelėse buvo lengvai aptikti ir stipriai sustiprinti antrąja vakcinacijos doze nuo Alpha ir Omicron BA.1. Priešingai, dviejų dozių imunizacijos režimas COVID-19 mRNR vakcinacija lėmė neaptinkamą serumą neutralizuojantį antikūną prieš Alpha ir Omicron BA.1 DIO pelėse, o neutralizuojančių antikūnų prieš Omicron BA.1 net 2 dieną nebuvo aptikta. po Omicron BA.1 iššūkio. Šie radiniai rodo, kad DIO pelių adaptyvus B ląstelių atsakas į mRNR vakciną yra labai susilpnėjęs, o tai gali būti dėl B ląstelių vystymosi, aktyvacijos ir funkcijų sutrikimų.64–66 Įdomu tai, kad vakcinacija suteikė tam tikrą Omicron BA apsaugą. .1-užkrėtė DIO pelėms apatinius kvėpavimo takus, bet ne užsikrėtusių gyvūnų nosies ertmėje. Nepakankama apsauga nosies turbinos audiniuose gali būti dėl nepakankamo gleivinės imuninio atsako po intramuskulinės vakcinacijos, kuri nesukėlė pakankamo apsauginio imuniteto gleivinės vietose.67,68

7 pav. DIO pelių alveoliniai makrofagai (AM) prisideda prie sureguliuoto antivirusinio atsako. a
Atlikdami transkripto analizę, atskleidėme, kad COVID{0}} mRNR vakcinacija padidino antivirusinį atsaką DIO pelių plaučiuose. Vėlesni eksperimentai atskleidė, kad IFN gamyba reaguojant į poli (I: C) arba SARS-CoV-2 smaigalio baltymo stimuliaciją buvo padidinta vakcinuotų DIO pelių alveolių makrofaguose. Kartu su sumažėjusiu virusų kiekiu ir histopatologiniais pokyčiais bei padidėjusia IFN-/ koncentracija Omicron BA.{5}} vakcinuotų DIO pelių plaučiuose, mūsų išvados rodo, kad mRNR vakcinacija stiprina įgimtą šeimininko imunitetą nutukusiems gyvūnams. prisideda prie stebimos apsaugos. Apskritai mūsų tyrimas atskleidžia svarbias žinias apie SARS-CoV-2 Alpha ir Omicron BA.1 infekciją, pakartotinį užsikrėtimą ir skiepijimą dietos sukeltų nutukusių pelių, kurios suteikia įžvalgų apie gydymo, gydymo ir vakcinacijos strategijas. nutukusių gyventojų. Mūsų tyrimas turi keletą apribojimų. Pirmiausia, praėjus 28 dienoms po pirminės infekcijos, atlikome pakartotinį iššūkį. Realiame gyvenime pacientų atminties ilgaamžiškumas ir apsauga nuo pakartotinės infekcijos turėtų būti stebimi ilgesnį laiką. Antra, šiame tyrime buvo naudojamos pelių patelės, nes žinoma, kad patelės turi stipresnį įgimtą ir adaptyvų imuninį atsaką nei patinai.69 Skirtingas imuninis atsakas prieš SARS-CoV-2 tarp lyčių ir jų vaidmuo COVID{{ 19}} reikėtų toliau tirti. Trečia, šiame tyrime naudojome tik laukinio tipo pelių modelį. Būsimuose klinikiniuose tyrimuose turėtų būti atliktas papildomas žmonių vertinimas, siekiant patvirtinti ir toliau tirti mūsų išvadas, ar COVID-19 mRNR vakcinacija pagerina įgimtą imuninį atsaką SARS-CoV-2 infekcija paskiepytiems nutukusiems žmonėms. Nepaisant to, mūsų tyrime pateikiamos svarbios įžvalgos, leidžiančios manyti, kad nutukę pacientai, užsikrėtę SARS-CoV{25}}, gali susirgti sunkesnėmis klinikinėmis ligomis ir yra jautresni pakartotinei infekcijai arba vakcinų proveržio infekcijoms. Svarbu tai, kad mūsų duomenys rodo, kad COVID-19 mRNR vakcinos gali išlikti veiksmingos nutukusiems asmenims, nepaisant mažo antikūnų atsako arba jo visai nėra, o tai dar labiau pabrėžia vakcinacijos svarbą šiose populiacijose.
Nuorodos
1 Zhou P, Yang XL, Wang XG ir kt. Plaučių uždegimo protrūkis, susijęs su nauju tikėtinos šikšnosparnio kilmės koronavirusu. Gamta. 2020;579(7798):270–273.
2 Chu H, Chan JF, Yuen TT ir kt. Lyginamasis SARS-CoV-2 ir SARS-CoV tropizmas, replikacijos kinetika ir ląstelių pažeidimo profiliavimas, turintis įtakos COVID-19 klinikinėms apraiškoms, užkrečiamumui ir laboratoriniams tyrimams: stebėjimo tyrimas. Lancetas mikrobas. 2020;1(1):e14–e23.
3 Chan JF, Kok KH, Zhu Z ir kt. 2019 m. naujo žmogaus patogeninio koronaviruso, išskirto iš netipine pneumonija sergančio paciento po apsilankymo Uhane, genominis apibūdinimas. Užkrečiami atsirandantys mikrobai. 2020;9(1):221–236.
4 Williamson EJ, Walker AJ, Bhaskaran K ir kt. Veiksniai, susiję su COVID{1}}mirtimi naudojant „OpenSAFELY“. Gamta. 2020;584(7821):430–436.
5 Guh DP, Zhang W, Bansback N, Amarsi Z, Birmingham CL, Anis AH. Gretutinių ligų, susijusių su nutukimu ir antsvoriu, dažnis: sisteminė apžvalga ir metaanalizė. BMC visuomenės sveikata. 2009;9:88.
6 Zhang AJX, Zhu H, Chen Y ir kt. Prostaglandino E{1}}sukeltas įgimto imuninio atsako į A(H1N1)pdm09 infekciją sutrikimas dietos sukeltoms nutukusioms pelėms gali būti atkurtas paracetamoliu. J Infect Dis. 2019;219(5):795–807.
7 Smith AG, Sheridan PA, Harp JB, Beck MA. Dietos sukeltų nutukusių pelių mirtingumas padidėjo ir imuninis atsakas pakito, kai užsikrėtė gripo virusu. J Nutr. 2007;137(5):1236–1243.
8 Hulme KD, Noye EC, Short KR, Labzin LI. Nereguliuojamas uždegimas nutukimo metu: sukelia gripo viruso ir SARS-CoV{2}} infekcijų sunkumą. Priekinis imunolis. 2021;12:770066.
9 Sanchis-Gomar F, Lavie CJ, Mehra MR, Henry BM, Lippi G. Nutukimas ir COVID pasekmės-19: kai susiduria epidemija ir pandemija. Mayo Clin proc. 2020;95(7):1445–1453.
10 Kruglikov IL, Shah M, Scherer PE. Nutukimas ir diabetas kaip gretutinės COVID ligos-19: pagrindiniai virusų ir bakterijų sąveikos mechanizmai ir vaidmuo. Elife. 2020;9:e61330.
11 Chen X, Hu W, Ling J ir kt. Hipertenzija ir diabetas lėtina viruso pašalinimą iš COVID{1}} pacientų. medRxiv. 2020. https://doi. org/10.1101/2020.03.22.20040774.
12 Nasr MC, Geerling E, Pinto AK. Nutukimo įtaka vakcinacijai nuo SARS-CoV-2. Priekinis endokrinolis (Lozana). 2022;13:898810.
13 Viana R, Moyo S, Amoako DG ir kt. Spartus epideminis SARS-CoV-2 Omikrono varianto plitimas Pietų Afrikoje. Gamta. 2022;603(7902):679–686.
14 Shuai H, Chan JF, Hu B ir kt. Susilpnėjusi SARS-CoV replikacija ir patogeniškumas-2 B.1.1.529 Omicron. Gamta. 2022;603(7902): 693–699.
15 Hu B, Chan JF, Liu H ir kt. Smailių mutacijų, prisidedančių prie pakeistų SARS-CoV-2 Omicron BA.1 ir BA.2 įvedimo nuostatų. Užkrečiami atsirandantys mikrobai. 2022;11:1–31.
16 Chan JF, Hu B, Chai Y ir kt. SARS-CoV-2 Omicron BA virusologiniai požymiai ir patogeniškumas.2. Cell Rep Med. 2022;3(9):100743.
17 Yuan S, Ye ZW, Liang R ir kt. SARS-CoV-2 Omicron patogeniškumas, pernešamumas ir tinkamumas Sirijos žiurkėnams. Mokslas. 2022;377(6604):428–433.
18 Lu L, Mok BW, Chen LL ir kt. SARS-CoV-2 Omicron varianto neutralizavimas BNT162b2 arba Coronavac vakcinos gavėjų serumais. Clin Infect Dis. 2022;75(1):e822–e826. https://doi.org/10. 1093/cid/ciab1041.
19 Liu L, Iketani S, Guo Y ir kt. Stulbinantis antikūnų vengimas, pasireiškiantis SARS-CoV -2 Omicron variantu. Gamta. 2022;602(7898): 676–681.
20 Iketani S, Liu L, Guo Y ir kt. SARS CoV{1}} Omikrono pogrupių antikūnų vengimo savybės. Gamta. 2022;604(7906):553–556.
21 Chen Y, Li C, Liu F ir kt. Su amžiumi susijusi SARS-CoV-2 proveržio infekcija ir imuninio atsako pokyčiai pelės modelyje. Užkrečiami atsirandantys mikrobai. 2022;11(1):368–383.
22 Zhang X, Goncalves R, Mosser DM. Pelių makrofagų išskyrimas ir apibūdinimas. Curr Protoc Immunol. 2008;83(1): 14:14.1.1-14.1.14.
23 Li C, Chen Y, Zhao Y ir kt. 2019 m. koronavirusinės ligos (COVID-19) mRNR vakcinos injekcija į veną gali sukelti ūminį mioperikarditą pelės modelyje. Clin Infect Dis. 2022;74(11): 1933–1950.
24 Li C, Chen YX, Liu FF ir kt. Sirijos žiurkėno modelio vakcina sustiprintos ligos nebuvimas ir netikėta teigiama apsauga nuo sunkaus ūminio kvėpavimo sindromo koronaviruso 2 (SARS-CoV-2) inaktyvuota vakcina, sušvirkšta per 3 dienas nuo viruso užkrėtimo. Clin Infect Dis. 2021;73(3):e719–e734.
25 Vogel AB, Kanevsky I, Che Y ir kt. BNT162b vakcinos apsaugo rezus makakas nuo SARS-CoV-2. Gamta. 2021;592(7853):283–289.
26 Lee AC, Zhang AJ, Chan JF ir kt. Oralinė SARS-CoV-2 inokuliacija nustato subklinikinę kvėpavimo takų infekciją su viruso plitimu auksiniuose Sirijos žiurkėnuose. Cell Rep Med. 2020;1(7):100121.
27 Meyerholz DK, Beck AP. Audinių dėmių atkartojamo įvertinimo tyrimo metu principai ir metodai. Lab Invest. 2018;98(7): 844–855.
28 Chu H, Shuai H, Hou Y ir kt. Nukreipimas į labai patogenišką koronaviruso sukeltą apoptozę sumažina viruso patogenezę ir ligos sunkumą. Sci Adv. 2021;7(25):eabf8577.
29 Chu H, Hou Y, Yang D ir kt. Koronavirusai replikacijai išnaudoja šeimininko cisteino asparto proteazę. Gamta. 2022;609(7928):785–792.
30 Zhang AJ, Li C, To KK ir kt. Į rinkliavą panašus receptoriaus 7 agonistas imikvimodas kartu su gripo vakcina pagreitina ir padidina humoralinį imuninį atsaką prieš A(H1N1)pdm09 gripo viruso infekciją pelėms BALB/c. Clin Vaccine Immunol. 2014;21(4):570–579.
31 Li C, KKW, Zhang AJX ir kt. Bendras stimuliavimas su TLR7 agonistu imikvimodu ir inaktyvuotomis gripo viruso dalelėmis skatina pelės B ląstelių aktyvaciją, diferenciaciją ir pagreitina specifinių antigenų antikūnų gamybą. Priekinis imunolis. 2018;9:2370.
32 Zhou R, To KK, Wong YC ir kt. Ūminė SARS-CoV{2}} infekcija pablogina dendritinių ląstelių ir T ląstelių atsaką. Imunitetas. 2020;53(4): 864–877.e5.
33 Chen S, Zhou Y, Chen Y, Gu J. fastp: itin greitas viskas viename FASTQ pirminis procesorius. Bioinformatika. 2018;34(17):i884–i890.
34 Edgaras R. URMAP, itin greito skaitymo žemėlapių sudarytojas. PeerJ. 2020;8:e9338.
35 Kim D, Paggi JM, Park C, Bennett C, Salzberg SL. Grafiku pagrįstas genomo derinimas ir genotipų nustatymas su HISAT2 ir HISAT genotipu. Nat Biotechnol. 2019;37(8):907–915.
36 Pertea M, Pertea GM, Antonescu CM, Chang TC, Mendell JT, Salzberg SL. „StringTie“ leidžia patobulinti transkripto atkūrimą iš RNR-seq skaitymų. Nat Biotechnol. 2015;33(3):290–295.
37 Love MI, Huber W, Anders S. Vidutinis kartos pokyčio ir dispersijos įvertinimas RNR-seq duomenims naudojant DESeq2. Genome Biol. 2014;15(12):550.
38 Yu G, Wang LG, Han Y, He QY. clusterProfiler: R paketas, skirtas palyginti biologines temas tarp genų grupių. OMIKAS. 2012;16(5):284–287.
39 Miao YR, Xia M, Luo M, Luo T, Yang M, Guo AY. ImmuCellAI pelė: įrankis, leidžiantis visapusiškai prognozuoti pelių imuninių ląstelių gausą ir imuninės mikroaplinkos vaizdavimą. Bioinformatika. 2021; 38:785.
40 Shuai H, Chan JF, Yuen TT ir kt. Nauji SARS-CoV-2 variantai išplečia rūšių tropizmą iki pelių. biomedicina. 2021;73:103643.
41 Gu H, Chen Q, Yang G ir kt. SARS-CoV-2 pritaikymas BALB/c pelėms vakcinos veiksmingumui tikrinti. Mokslas. 2020;369(6511):1603–1607.
42 Halfmann PJ, Iida S, Iwatsuki-Horimoto K ir kt. SARS-CoV-2 Omicron virusas sukelia susilpnėjusią pelių ir žiurkėnų ligą. Gamta. 2022;603(7902):687–692.
43 Krause PR, Fleming TR, Longini IM ir kt. SARS-CoV-2 variantai ir vakcinos. N Engl J Med. 2021;385(2):179–186.
44 Corbett KS, Nason MC, Flach B ir kt. Nežmoginių primatų imuninės koreliacijos mRNR{1}} vakcina nuo SARS-CoV-2. Mokslas. 2021;373(6561):eabj0299.
45 Hamer M, Gale CR, Kivimäki M, Batty GD. Antsvoris, nutukimas ir hospitalizavimo rizika dėl COVID-19: bendruomenės kohortinis suaugusiųjų Jungtinėje Karalystėje tyrimas. Proc Natl Acad Sci USA. 2020;117(35):21011–21013.
46 Mannar D, Saville JW, Zhu X ir kt. SARS-CoV-2 Omikrono variantas: antikūnų vengimas ir smaigalio baltymo-ACE2 komplekso krio-EM struktūra. Mokslas. 2022;375(6582):760–764.
47 Zhang Y, Huang K, Wang T ir kt. SARS-CoV-2 greitai prisitaiko prie senų BALB/c pelių ir sukelia tipišką pneumoniją. J Virol. 2021;95(11):e02477.
48 Huang H, Zhu Y, Niu Z, Zhou L, Sun Q. SARS-CoV-2 N501Y variantai ir galimas jų perdavimas pele. Ląstelių mirties skirtumas. 2021;28(10):2840–2842.
49 Niu Z, Zhang Z, Gao X ir kt. N501Y mutacija suteikia pelėms SARS-CoV-2 pernešimą tarp rūšių, sustiprindama receptorių prisijungimą. Signal Transduct Target Ther. 2021;6(1):284.
50 Chu H, Chan JF, Yuen KY. Gyvūnų modeliai SARS-CoV-2 tyrime. Nat metodai. 2022;19(4):392–394.
51 Briand F, Sencio V, Robil C ir kt. Dietos sukeltas nutukimas ir NASH trukdo pasveikti nuo SARS-CoV{3}}infekuotų auksinių žiurkėnų. Virusai. 2022;14(9):2067.
52 Port JR, Adney DR, Schwarz B ir kt. Riebalų ir cukraus turinčios dietos sukelti lipidų apykaitos pokyčiai yra susiję su šiek tiek padidėjusiu COVID{4}} sunkumu ir uždelstu Sirijos žiurkėno pasveikimu. Virusai. 2021;13(12):2506.
53 Zhang YN, Zhang ZR, Zhang HQ ir kt. Padidėjęs nutukusių pelių, užsikrėtusių pelėms pritaikytu SARS-CoV-2, sergamumas. Cell Discov. 2021; 7(1):74.
54 Akbar AN, Gilroy DW. Senstantis imunitetas gali sustiprinti COVID-19. Mokslas. 2020;369(6501):256–257.
55 Rebello CJ, Kirwan JP, Greenway FL. Nutukimas, dažniausia gretutinė SARS-CoV liga-2: ar leptinas yra ryšys? Int J Obes. 2020;44(9):1810–1817.
56 Mullen M, Gonzalez-Perez RR. Leptino sukeltas JAK / STAT signalizavimas ir vėžio augimas. Vakcinos (Bazelis). 2016;4(3):26.
57 Zhu A, Chen Z, Wang Y ir kt. Žmonių ir ACE2 humanizuotų pelių imuninis atsakas į SARS-CoV-2 infekciją. Fundam Res. 2021;1(2):124–130.
58 Achkar JM, Casadevall A. Antikūnų sukeltas imunitetas nuo tuberkuliozės: pasekmės vakcinos kūrimui. Ląstelės šeimininko mikrobas. 2013;13(3):250–262.
59 Casadevall A, Pirofski LA. Nauja antikūnų sukelto imuniteto sintezė. Nat Immunol. 2011;13(1):21–28.
60 Israelow B, Mao T, Klein J ir kt. Adaptyvūs imuniniai veiksniai, lemiantys viruso pašalinimą ir apsaugą SARS-CoV -2 pelių modeliuose. Sci Immunol. 2021;6(64):eabl4509.
61 Smith AG, Sheridan PA, Tseng RJ, Sheridan JF, Beck MA. Selektyvus dendritinių ląstelių funkcijos sutrikimas ir pakitęs antigenui specifinis CD8+ T-ląstelių atsakas dietos sukeltoms nutukusioms pelėms, užsikrėtusioms gripo virusu. Imunologija. 2009;126(2):268–279.
62 Macia L, Delacre M, Abboud G ir kt. Nutukusių pelių dendritinių ląstelių funkcionalumo ir pastovios būsenos skaičiaus sutrikimas. J Immunol. 2006;177(9):5997–6006.
63 Honce R, Schultz-Cherry S. Nutukimo įtaka A gripo viruso patogenezei, imuniniam atsakui ir evoliucijai. Priekinis imunolis. 2019; 10:1071.
64 Frasca D, Blomberg BB. Nutukimas pagreitina pelių ir žmogaus B ląstelių amžiaus defektus. Priekinis imunolis. 2020; 11:2060.
65 Kennedy DE, Knight KL. B limfopoezės slopinimas adipocitų ir IL-1- gaminančių mieloidinių supresorių ląstelių. J Immunol. 2015;195(6):2666–2674.
66 Pham TD, Chng MHY, Roskin KM ir kt. Riebalų dieta sukelia sisteminius B ląstelių repertuaro pokyčius, susijusius su atsparumu insulinui. Gleivinės imunolis. 2017;10(6):1468–1479.
67 Alu A, Chen L, Lei H, Wei Y, Tian X, Wei X. Intranazalinės COVID{1}} vakcinos: nuo stalo iki lovos. EBiomedicina. 2022;76:103841.
68 Tiboni M, Casettari L, Illum L. Vakcinacija per nosį nuo SARS CoV-2: sinergetinė ar alternatyva į raumenis vakcinoms? Int J Pharm. 2021;603:120686.
69 Klein SL, Flanagan KL. Lyties skirtumai imuniniame atsake. Nat Rev Immunol. 2016;16(10):626–638.


