

Metilinimas kaip pagrindinis Tau agregacijos ir neuronų sveikatos reguliatorius sergant Alzheimerio liga
Apr 28, 2023
Abstraktus
Neurodegeneracinės ligos, tokios kaip Alzheimerio, Parkinsono ir Hantingtono liga, yra susijusios su nenormaliu toksiškų baltymų agregatų agregacija ir kaupimu. Priežastinių baltymų modifikacijos po transliacijos (PTM) vaidina svarbų vaidmenį ligos etiologijoje, nes jos gali sulėtinti arba pagreitinti ligos progresavimą. Alzheimerio liga yra susijusi su dviejų pagrindinių baltymų agregatų – tarpląstelinių neurofibrilinių raizginių, sudarytų iš su mikrotubuliais susijusio baltymo Tau ir tarpląstelinių amiloidinių plokštelių – agregacija ir kaupimu. Potransliacinės modifikacijos yra svarbios Tau funkcijos reguliavimui, tačiau dėl PTM disbalanso gali atsirasti nenormali Tau funkcija ir agregacija. Tau metilinimas yra vienas iš svarbių Tau PTM jo fiziologinėje būsenoje. Tačiau Tau lizino metilinimo parašas pasikeičia, kai jis įgyja patologinę agreguotą formą. Tau metilinimas gali konkuruoti su kitais PTM, tokiais kaip acetilinimas ir ubikvitinacija. PTM būsena šiose vietose lemia Tau baltymo likimą jo funkcijos ir stabilumo požiūriu. Visuotinis metilinimas neuronuose, mikroglijose ir astrocituose dalyvauja daugelyje ląstelių funkcijų, susijusių su jų vaidmeniu epigenetiniame genų ekspresijos reguliavime per DNR metilinimą. Čia aptarėme metilinimo poveikį Tau funkcijai konkrečioje vietoje ir jų kryžminį pokalbį su kitomis lizino modifikacijomis. Mes taip pat išsamiau išnagrinėjome metilinimo vaidmenį epigenetiniuose aspektuose ir neurodegeneracinėse sąlygose, susijusiose su metilinimo metabolizmo disbalansu, turinčiu įtakos pasaulinei ląstelių metilinimo būsenai.
Raktažodžiai
Tau, metilinimas, metiltransferazės, potransliacinės modifikacijos, epigenetika, agregacija.

Spustelėkite čia, kad gautumėtekoks yra Cistanche poveikis
Fonas
Alzheimerio liga siejama su klaidingu daugiausia dviejų baltymų susilankstymu. Amiloido peptidas agreguojasi ekstraląsteliniu būdu ir susidaro skaidant su membrana susijusį amiloido pirmtako baltymą (APP). Tau yra pagrindinis baltymas, dalyvaujantis stabilizuojant mikrotubulus neuronų aksonuose, kurie sudaro tarpląstelinius neurofibrilinius raizginius (NFT) [1]. Mikrovamzdeliai veikia kaip molekulinių variklių kinezino ir dyneino takeliai, skirti atlikti intracelulinį transportą, taip pat išvalyti toksiškų baltymų kaupimąsi. Tau gedimas sukelia šio transportavimo mechanizmo defektą, dėl kurio atsiranda citotoksiškumas ir neurodegeneracija, nes jie gali plisti ir sukelti toksiškumą kitose ląstelėse [2–4]. Neurofibriliniai raizginiai yra būdingas Alzheimerio ligos ir su ja susijusių neurodegeneracinių tauopatijų, kurių pagrindinis komponentas yra Tau, požymis [5, 6]. Tau yra labai tirpus baltymas, tačiau jo nenormalios potransliacinės modifikacijos veikia natūraliai išsiskleidusią jo struktūrą ir gebėjimą jungtis su mikrotubuliais [7–9]. Tau funkcija ir struktūra priklauso nuo ląstelių aplinkos, taip pat nuo potransliacinių modifikacijų [10]. Fosforilinimas laikomas svarbiu Tau PTM, nes jis yra susijęs su fiziologinėmis ir patologinėmis būsenomis. Fosforilinimas reikalingas Tau susiejimui su mikrotubuliais. Tačiau dėl Tau hiperfosforilinimo jis atsiskiria nuo mikrotubulių ir sukelia agregaciją [10–12]. Fosforilinta Tau būsena savo ruožtu priklauso nuo kinazės aktyvumo lygio ir pusiausvyros tarp kinazių ir fosfatazių neuronuose [13]. PTM kartografavimas Tau baltyme, gautame iš AD pacientų smegenų, atskleidė fosforilinimo vietas, kurių normaliomis sąlygomis nėra [14]. Kai kurios iš pagrindinių patologinių vietų yra AT8 (pS202/pT205), AT100 (pT212/pS214), AT180 (pT231/pS235), PHF1 (pS396/pS404), pS356, pY394, pT4093, pS4093, pS4093, pS4093, p. Dauguma šių vietų yra Tau kartotiniame regione ir gretimame regione (N ir C galas). Tikėtina, kad modifikacijos tam tikrose vietose sukels Tau agregaciją, sutrikdydami krūvio pasiskirstymą ir keisdami intramolekulinę sąveiką [15–18]. Tau fosforilinimą vykdo skirtingos kinazių šeimos. Tai apima prolino nukreiptas baltymų kinazes, panašias į GSK-3, CDK5 ir MAP kinazes (mitogeno aktyvuotos baltymų kinazės); į neproliną nukreiptos baltymų kinazės, panašios į CK (kazeino kinazė), MARK (mikrotubulių afinitetą reguliuojančios kinazės), PKA (baltymų kinazės A) ir į tirozino specifines kinazes panašias SFK (Src šeimos kinazės) [19]. Šių kinazių lygis ir aktyvumas yra padidėjęs sergant AD, ir nustatyta, kad dauguma jų yra kartu su NFT. Tau hiperfosforilinimas įvyksta, kai yra grynasis fosforilinimo padidėjimas, ty yra disbalansas tarp fosforilinimo ir defosforilinimo. Ši būklė dažniausiai atsiranda dėl padidėjusio kinazės aktyvumo kartu su baltymų fosfatazės slopinimu. PP2A (baltymų fosfatazė 2A) yra pagrindinė ląstelės fosfatazė, turinti beveik 70 procentų viso ląstelių fosfatazės aktyvumo [20–22]. PP2A reguliuojamas dviem būdais – metilinimas ir endogeninių ląstelių inhibitorių, vadinamų I1 ir I2, veikimu. PP2A aktyvumas sergant AD gali sumažėti iki 50 procentų dėl hipometilinimo arba padidėjusio jo inhibitorių kiekio [23].
Pažymėtina, kad Tau yra 11 žinomų metilinimo vietų fiziologinėmis sąlygomis agregacijos metu; sumažėja metilinimo mastas. Tau buvo pažymėtos 7 metilinimo vietos, esančios kaip suporuoti spiraliniai siūlai (PHF) [24, 25]. Metilinimas šiose vietose potencialiai koreliuoja su fosforilinimo atsiradimu ant serino šiuose motyvuose. Buvo atlikti tyrimai, kurie parodė Tau fosforilinimo (pT181) ryšį su padidėjusiu bendro homocisteino kiekiu ir sumažėjusiu S-adenozilmetionino: S-adenozilhomocisteino santykiu smegenų skystyje (CSF) [26, 27]. Padidėjęs homocisteino kiekis rodo netinkamą metilinimo potencialą ląstelėse. Baltymų fosfatazė 2A (PP2A) veikia kaip aktyvus fermentas metilintoje būsenoje, o tai rodo nenormalaus metilinimo potencialo poveikį Tau fosforilinimui [28–30]. Be netiesioginio metilinimo poveikio Tau fosforilinimui, metilinimas gali atlikti svarbų vaidmenį moduliuojant Tau agregacijos polinkį. Nustatyta, kad in vitro Tau metilinimas sumažina Tau agregacijos polinkį, nedarant įtakos jo gebėjimui stabilizuoti mikrotubulų surinkimą. Mikrotubulų polimerizacija buvo apsunkinta tik esant aukštesnei stechiometrijai metilintam Tau. Metilintas Tau sudarė fibriles, panašias į nemodifikuotą Tau, tačiau nustatyta, kad bendras agregacijos polinkis ir kritinė Tau koncentracija inicijuoti agregacijos reakciją yra padidėjusi [24].
Metilinimą atlieka tam tikra fermentų klasė, vadinama metiltransferazėmis. II klasės metiltransferazės yra SET domeną turintys fermentai, kurie daugiausia veikia kaip histono metiltransferazės [31–33]. Tačiau yra tos pačios klasės metiltransferazių, tokių kaip G9a ir SUV39, kurios juda tarp branduolio ir citoplazmos, kad veiktų citoplazmos baltymus [34, 35]. Lizino likučiai baltyme gali būti metilinami, acetilinami, ubikvitinuojami, SUMOilinami ir glikuojami (1 pav.) [9, 36, 37]. Vienas iš svarbių potransliacinės modifikacijos lizino liekanoje atributų yra galimybė konkuruoti dėl vienos konkrečios vietos modifikavimo. Modifikacijos būsena gali nulemti baltymo funkciją. Yra tiesioginis metilinimo ryšys su kitomis lizino modifikacijomis, daugiausia acetilinimo ir ubikvitinimu Tau baltyme [9, 25, 29]. Vienos lizino liekanos metilinimas, acetilinimas ar ubikvitinavimas gali nulemti Tau baltymo likimą įvairiomis kryptimis. Taigi svarbu ištirti visų šių PTM vykstančių kryžminių pokalbių pobūdį, kad būtų galima geriau suprasti Tau funkcijos mechanizmą sveikatai ir ligoms. Be to, galimas kryžminis pokalbis tarp metilinimo su fosforilinimu PHF6 ir PHF6* motyvuose (VQIINK ir VQIVYK), kur acetilinimas atlieka svarbų vaidmenį, kaip teigiama kai kuriuose tyrimuose [38, 39]. Tačiau norint suprasti pagrindinius mechanizmus, susijusius su metilinimo ir fosforilinimo kryžminiu pokalbiu, reikia atlikti tolesnius tyrimus.

Tau metilinimas sergant Alzheimerio liga
Tau gali būti taikomas monometilinimas arba dimetilinimas, o tai lemia jų reguliavimo vaidmenį, tačiau iki šiol apie trimetilinimą Tau nebuvo pranešta [9, 24]. Pavyzdžiui, metilinimo mastas konkrečiose vietose yra atvirkščiai proporcingas Tau agregacijos polinkiui. Tau metilinimas vyksta keliuose lizinuose ir keliose arginino liekanose, veikiant fermentams, vadinamiems lizino metilo transferazėmis arba arginino metilo transferazėmis. Tačiau mažai žinoma apie metilo transferazes, susijusias su Tau baltymo modifikavimu. Neseniai buvo paskelbta Bachmann ir kt. ataskaita apie metilo transferazės SETD7 vaidmenį Tau monometilinimui ties K130 ir šalia esančia lizino liekana K132 bei jos svarbą branduolio Tau lokalizacijoje [40]. Dauguma metilinimo vietų yra Tau mikrotubulus surišančioje srityje [9, 24, 25]. Norėdami sužinoti apie Tau metilinimo vaidmenį MTBR, Funk ir kt., In vitro atliko tubulino polimerizacijos tyrimą, kai nėra Tau ir yra sintetiškai metilintas arba nemodifikuotas Tau. Pastebėta, kad Tau metilinimas neturi įtakos tubulino polimerizacijos laipsniui jo metilintoje būsenoje. Nustatyta, kad tubulino polimerizacija buvo slopinama tik tada, kai Tau turi didesnę metilinimo stechiometriją. Be to, buvo nustatyta, kad Tau agregacijos polinkis yra atvirkščiai susijęs su metilinimo mastu [24].
Ištirta, kad monometilintų vietų mastas didėja senstant, taip pat progresuojant AD. Tirpiojo Tau telkinyje taip pat yra metilinto arginino vietų normaliose smegenyse. Dabartinės žinios apie Tau metilinimo pasekmes AD rodo, kad metilinimas yra tiek normalaus Tau, tiek jo patologinės formos, kaip PHF, dalis. Yra žinoma, kad arginino likučiai R126, R155 ir R349 yra monometilinti tiek normaliame, tiek patologiniame Tau [41]. Spėjama, kad arginino metilinimas Tau yra susijęs su Tau prisijungimu prie membranos ir jo nukleo-citoplazminio judėjimo [42, 43]. Tačiau šių procesų mechanizmas nėra aiškus. Metilinimo parašo pokyčiai atsiranda sergant AD, o tai gali pakeisti intramolekulines jėgas Tau molekulėje, todėl pasikeičia vietinės konformacijos. Vietinių konformacijų pokyčiai savo ruožtu turi įtakos tirpumui ir surišimo savybėms. Taigi, PTM rinkinys lemia Tau tirpumą ir agregacijos polinkį. Netoliese yra keletas Tau fosforilinimo ir metilinimo vietų, kurios gali pakeisti abiejų modifikacijų atsiradimą. Pavyzdžiui, nustatyta, kad Tau fosforilinimas ties S262 vyksta dažniau kartu su metilinimas ties K267 [25]. Be to, metilintas Tau buvo paplitęs paveiktuose smegenų regionuose, gautuose iš AD pacientų. Te Tau pažeidimai AD smegenyse parodė imunoreaktyvumą metilinto Tau, kai buvo paženklinti anti-meK (anti-metilinto lizino) antikūnu [25].
Normalaus Tau ir PHF gauto Tau metilinimo modelis yra svarbi užuomina apie jo reguliavimo vaidmenį agreguojant. Normalus Tau žmogaus smegenyse gali būti monometilintas arba dimetilintas, o PHF Tau yra tik monometilintas [37]. Yra aštuonios lizino liekanos, kurios yra dimetilintos iš viso vienuolikos Tau metilinimo vietų. Be to, iš PHF gautame Tau yra mažiau metilinimo vietų, palyginti su normaliu Tau. Metilinto Tau buvimas šalia fosforilinimo vietų, ypač KXGS motyvuose, gali suteikti apsauginį vaidmenį nuo fosforilinimo. Be to, dvi metilinimo vietos K24 ir K44 yra greta kaspazės ir kalpaino skilimo vietų, o kitos generuoja fragmentus, kurie yra linkę į agregatus [44–46]. Yra nedaug tyrimų dėl tiesioginio metilinimo vaidmens Tau funkcijai ir agregacijai, tačiau dabartinės žinios rodo, kad tai gali turėti svarbų vaidmenį sprendžiant Tau likimą.

Cistanche tabletėsirCistanche nauda
Metilinimas kaip epigenetinio reguliavimo būdas ir jo vaidmuo sergant Alzheimerio liga
Neurodegeneracinėmis sąlygomis metilinimas yra susijęs ne tik su Tau PTM, bet ir yra labai svarbus dėl jo vaidmens epigenetiniame reguliavime ir metaboliniuose aspektuose. Alzheimerio liga yra susijusi su daugybe neuronų ląstelių, įskaitant neuronus, mikrogliją ir astrocitus, epigenetinės struktūros pokyčių [47–50]. Mikroglijoje 2 žievelės homologo stipriklis (EZH2) veikia kartu su polikombinio represinio komplekso 2 kataliziniu subvienetu, kad atliktų transkripcijos nutildymą. Šis kompleksas dalyvauja trimetilinant H3K27 (H3K27me3) [51]. Mikroglijų epigenetinė sudėtis dažnai keičiasi ir stimuliuojant pasireiškia fenotipiniai pokyčiai [52]. Nustatyta, kad mikroglijos, iš anksto paveiktos LPS arba TLR4 ligandu, patiria ryškių epigenetinės struktūros pakitimų, kai yra pradėtos ir neapdorotos [51]. Atvirkščiai, esant imunosupresijai, nustatyta, kad H3K3Me3 metilinimo lygis yra sumažintas. Neuroninėse ląstelėse vyksta CpG hipometilinimas ties brca1 promotoriumi (1-asis krūties vėžys) [53]. Sumažėjęs BRCA1 reguliavimas sukelia dvigubos DNR pertraukos atstatymo defektus ir galiausiai sukelia neuronų mirtį (2 pav.). Epigenetinis genų ekspresijos reguliavimas vyksta metilinant dviem būdais – modifikuojant lizino liekanas histono šerdyje ir metilinant CpG dinukleotidus [54–57]. Tačiau yra ne CpG metilinimo atvejų. Tiek histono lizino metilinimas, tiek DNR metilinimas tarnauja genų nutildymui ir transkripcijos slopinimui. CpG klasteriai, vadinami CpG salomis, dažnai yra genų promotoriaus ir stipriklio regione. Šiose CpG salose yra metilinti arba hidroksimetilinti citozinai, tokie kaip 5-metilcitozinas (5 mC) ir 5-metilhidroksicitozinas (5 hmC) [58–60]. 5 mC yra susijęs su genų represijomis, o 5 mC pavertimas 5 mC reiškia genų aktyvaciją [61, 62]. Metilinimas CpG trukdo prisijungti prie transkripcijos faktorių, tokių kaip Ets-1, taip pat su 5mC jungiančiais baltymais, tokiais kaip MeCP2, MBD1, MBD2 ir MBD4, kurie veikia kaip transkripcijos represorius [63]. Be DNR metilinimo CpG vietose, taip pat yra daug CpH (H reiškia A, T arba C) vietų, kurios yra metilintos [64, 65].
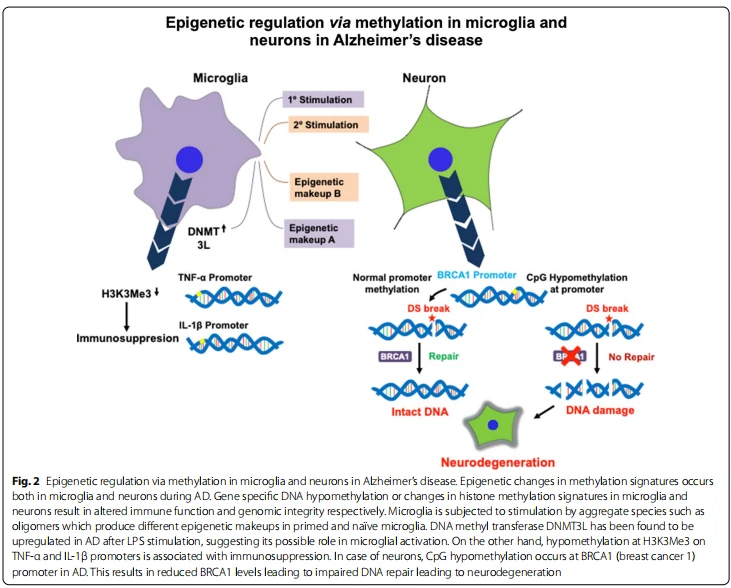
Egzistuoja penki DNR metiltransferazių tipai, dalyvaujantys metilo grupės pernešime iš S-adenozil-L-metionino į nukleotidus DNR – DNMT1, DNMT2, DNMT3a, DNMT3b ir DNMT3L [66, 67]. Iš šių DNMT1 visų pirma dalyvauja palaikant DNR metilinimo parašus. Sergant Alzheimerio liga yra sumažėjusio 5mC ir DNR metiltransferazės 1 (DNMT1) kiekio hipokampo ir laikinųjų smegenų srityje [68, 69]. Tačiau kitame tyrime padidėjęs DNR metilinimo ir DNMT lygis buvo nustatytas priekinėje žievėje, laikinojoje žievėje ir smegenyse [70–72]. DNR metilinimas yra tvirtas genų reguliavimo mechanizmas epigenetiniu lygiu, todėl metilinimo parašai keičiasi genų lokuse, priklausomai nuo ląstelių sąlygų. CpG salų metilinimo lygiai stipriklio ir promotoriaus regionuose buvo tiriami sergant AD, o tai rodo epigenetinį neuronų sveikatai svarbių genų stiprintuvų disreguliavimą [73, 74]. Pastebėtas metilinimo praradimas esant CpH stiprikliuose ir promotoriuose, esant AD sąlygoms, todėl pagerėjo tikslinio geno ekspresija. Sumažėjęs šių tikslinių genų metilinimo lygis yra susijęs su per dideliu apoptotinių ir uždegiminių takų stimuliavimu [73–76]. Panašiai sumažėjęs metilinimas bace1 stiprintuve sukelia BACE1 perprodukciją, o tai savo ruožtu sukelia amiloido gamybą [73, 77]. BACE1 lygio reguliavimas taip pat yra susijęs su stiprintojų elementų hipometilinimu Dauno sindromo ląstelių adhezijos molekulėse, tokiose kaip 1 (DSCAML1). Tai sukelia pernelyg didelį bace1 reguliavimą ankstyvosiose AD stadijose [73]. Daugelis stipriklio metilinimo pokyčių slypi genuose, reguliuojančiuose ląstelių ciklą reguliuojančių baltymų, tokių kaip nuo ciklino priklausomos kinazės (CDK), ekspresiją. Sumažėjęs CDK metilinimas sustiprina jų lygį ir sutrikdo ląstelių ciklo reguliavimą [78–80]. Dėl to staigiai atsinaujina neuronų ląstelių ciklas, kuris dėl tinkamo reguliavimo mechanizmų trūkumo tampa neveiksmingas [79]. Dėl to skatinama neuronų mirtis ir sinapsinis praradimas, dėl kurio atsiranda neurodegeneracija. DNR hipometilinimo atsiradimas stiprikliuose yra susijęs su amiloido agregatų susidarymu ankstyvosiose AD stadijose [73].
Yra prieštaringų pastabų dėl metilinimo lygio, todėl sunku suprasti DNR metilinimo vaidmenį neurodegeneracijoje. Taigi metilinimo poveikis gali priklausyti ne tik nuo lygių, bet ir nuo DNR metilinimo vietos. Skirtingi DNR metilinimo ir genų ekspresijos modeliai yra susiję su normaliomis fiziologinėmis sąlygomis ir patologinėmis sąlygomis [81–85]. Išsamus AD specifinių metilinimo parašų DNR tyrimas gali būti svarbus biologinis žymeklis vertinant rizikos veiksnius, progresavimą ir AD aptikimą.

Cistanche ekstraktas
Kryžminis pokalbis apie Tau metilinimą su kitais PTM
PTM yra daugelio ląstelių procesų, kurie patys yra labai reguliuojami, reguliavimo būdas. Baltymų PTM rinkinys sukuria kodą, kuris nustato jo struktūrą ir funkciją. Kelių modifikacijų rinkinio atsiradimas arba tikimybė, kad viena vieta bus modifikuota skirtingų PTM, yra labai svarbi baltymų funkcijai ir skiriasi priklausomai nuo ląstelių aplinkos. Įvairios lizino liekanos ant Tau yra modifikuojamos daugiau nei vienos rūšies. Pavyzdžiui, K180 gali būti acetilintas arba metilintas, K254 ir K290 gali būti metilintas arba ubikvitinuotas, o K385 gali būti metilintas arba SUMOilintas [9, 36]. Tam tikros liekanos PTM būsena būdinga Tau funkcinei būklei.
Yra įrodymų, kad gali būti kryžminis pokalbis tarp metilinimo, acetilinimo, ubikvitinacijos ir SUMOilinimo, o pagal sąlygą pirmenybė teikiama vienam PTM. Ubikvitinacija ties K254 yra labai svarbi fiziologinėmis sąlygomis Tau homeostazei palaikyti [25, 86]. Sergant AD, Tau metilinimo lygis ties K254 viršija jo ubikvitinacijos lygį PHF, o tai trukdo Tau agregatų klirensui ubikvitino proteasominėje sistemoje (UPS) [25]. Tačiau nustatyta, kad kita lizino liekana K290 yra ubikvitinuota agreguotame Tau, o metilinama normaliomis sąlygomis [41]. Ubikvitinacija taip pat gali būti susijusi su fosforilinimu, nes nustatyta, kad Tau ubikvitinacija PHF yra susijusi su fosforilinimu, nes ji vyksta prieš ubikvitinaciją ir įtraukimą į PHF [87–90]. Panašiai acetilinimas kaip PTM yra žinomas dėl savo vaidmens tauopatijose. Tau baltymas, kaip PHF, yra labai acetilintas patologinėje būsenoje, palyginti su fiziologinėmis sąlygomis. Lizino likučiai K163, K174 ir K180 gali būti atitinkamai acetilinami arba metilinami esant patologinėms ir fiziologinėms būsenoms [37, 91]. Metilinimas atlieka svarbią Tau baltymo stabilumo funkciją. Gali būti kryžminis pokalbis tarp Tau metilinimo ir fosforilinimo, kai abi vietos yra greta. Pavyzdžiui, trys KXGS motyvuose esantys lizinai (K259, K290 ir K353) yra metilinami fiziologinėmis sąlygomis [24, 37]. Lizino modifikacijos KXGS motyvuose labai sumažina gretimo serino fosforilinimo potencialą, o tai reiškia apsauginį metilinimo vaidmenį. Tačiau nustatyta, kad lizino acetilinimas KXGS motyve yra PHF ir padidina Tau hiperfosforilinimą [92]. Dauguma metilinimo vietų yra mikrotubulų surišimo regione (MTBR), iš kurių trys vietos sutampa su ubikvitinacija [24, 25]. Pranešama, kad acetilinimas K163, K174 ir (arba) K180 vyksta in vivo, o acetilinimo užimtumas didėja progresuojant AD. Taip pat nustatyta, kad MTBR esančios vietos (K274 ir K280) arba gretimos (K259 ir K353) PHF6* yra acetilintos [9, 37]. Tau SUMOilinimas vyksta daugiausia dviejose vietose – K340 ir K385, kurios abi yra Tau kartotinio domeno regione [93]. Yra žinoma, kad SUMOilinimas K340 turi patologinį poveikį, nes jis koreliuoja su Tau fosforilinimu su AD susijusiuose fosfoepitopuose, tokiuose kaip T231 ir S262 [94]. Nors žinoma, kad SUMOilinimas K340 turi patologinį vaidmenį; K385 taip pat yra metilinimo ir ubikvitinacijos vieta, o tai rodo lemiamą jo vaidmenį neurodegeneracijoje. Galimybė modifikuoti vieną vietą naudojant skirtingas PTM etiketes (metilinimas, acetilinimas ir kt.) gali paskatinti skirtingus Tau baltymo likimus (3 pav.). Dabartiniai įvairių PTM kryžminių pokalbių įrodymai rodo, kad konkurencija dėl lizino liekanų gali valdyti Tau baltymo funkcinę būseną ir apyvartą.

Tau metilinimo reguliavimas ir jo metabolinis poveikis neuronų sveikatai
Bendro metilinimo/demetilinimo būsena ląstelėse priklauso nuo universalių metilo grupių donorų, ty S-adenozilmetionino (SAM), gauto iš metionino, telkinio. SAM, dovanojant metilo grupę, virsta S-adenozilo homocisteinu (SAH), kuris savo ruožtu grįžtamosios reakcijos metu hidrolizuojasi į homocisteiną (4 pav.) [95–97]. Homocisteinas gali būti paverstas atgal į metioniną, veikiant fermentui metionino sintazei, skatinančiam optimalų metilinimo potencialą ląstelėje, arba paversti cisteinu trans-sulfuracijos reakcijoje naudojant folatą [98, 99]. Taigi, SAM ir SAH santykis yra svarbus metilinimo potencialo veiksnys, kai didesnis pastarojo lygis atspindi sutrikusį ląstelių metilinimą [100]. Metilo grupės metabolizmas ląstelėse laikomas kritiniu neuronų sveikatos veiksniu, nes metilinimas dalyvauja įvairiuose reguliavimo procesuose, tokiuose kaip genų slopinimas per DNR metilinimą, epigenetinis reguliavimas per histono modifikaciją, neuromediatorių metabolizmas, vaidmuo fosfolipidų sintezėje ir mielino susidaryme. [101–108].

Tau fosforilinimo disbalansas atsiranda dėl per didelio kinazės aktyvumo arba sumažėjusio fosfatazės aktyvumo. Sergant AD, Tau hiperfosforilinimas gali įvykti, jei PP2A aktyvumas yra slopinamas nepakeitus kinazės aktyvumo [109]. Mažesnis SAM: SAH santykis yra svarbus tauopatijų atveju, nes yra netiesioginis ryšys tarp sutrikusio ląstelių metilinimo ir Tau hiperfosforilinimo [110]. Šiuo aspektu PP2A yra svarbi baltymų fosfatazė, kuri, kaip žinoma, reguliuoja Tau fosforilinimo būseną. PP2A sudaro trys aktyvios formos subvienetai – A, B ir C [111–113]. Aktyvių fermentų susidarymą reguliuoja grįžtamasis metilinimas C subvieneto C gale, kuris nukreipia fermento heterotrimero susidarymą. Be to, kintamosios srovės dimeryje vyksta metilinimas, kuris, kaip įrodyta, skatina jo afinitetą B subvienetui [113]. Taigi, metilinimas vaidina pagrindinį vaidmenį PP2A aktyvavime. SAH, susidaręs dėl SAM sukelto metilinimo, sukelia homocisteiną, kuris paprastai virsta metioninu arba gali būti grąžintas į SAH, susiejant su adenozinu [114]. Tam tikri rizikos veiksniai, tokie kaip folio rūgšties (reikalingos trans-sulfuracijos reakcijai) arba kobalamino (reikalingo homocisteino pavertimui metioninu) trūkumas, mitybos įpročiai, genetiniai veiksniai ir kt., skatina SAH kaupimąsi [97, 115–117]. SAH kaupimasis skatina bendrą hipometilinimą, skatinantį metilo donorų SAM fondo išeikvojimą, taip pat yra konkurencingas metilo transferazės fermentų inhibitorius. Padidėjęs homocisteino kiekis paprastai laikomas kraujagyslių ligų biomarkeriu [118–120]. Yra žinoma, kad medžiagų apykaitos defektai, lemiantys homocisteino kaupimąsi, įvairiais mechanizmais veikia pažinimo funkciją [121, 122]. Homocisteinas yra atsakingas už poveikį neuronų sveikatai per oksidacinį stresą, amiloido nusėdimą ir skatina Tau fosforilinimą [123–130]. Homocisteino kiekis gali būti laikomas ir rizikos veiksniu, ir patologiniu žymeniu. Taigi, nukreipimas į padidėjusį homocisteino kiekį gali padėti patikrinti AD progresavimą.
Santrauka ir ateities kryptys
Alzheimerio ligos atsiradimas ir progresavimas priklauso nuo daugybės veiksnių, iš kurių svarbų vaidmenį atlieka pagrindinių baltymų modifikacijos po transliacijos. Tau yra veikiamas daug PTM keliose vietose, o kalbant apie Tau PTM, fosforilinimas yra gerai ištirtas ir nustatyta, kad jis turi lemiamą vaidmenį ligos progresavime. Tačiau metilinimo vaidmenį reikia ištirti ir aiškiai suprasti. Viena vertus, Tau metilinimas atlieka apsauginę funkciją nuo jo agregacijos, o kita vertus, jis gali turėti žalingą poveikį. Priklausomai nuo metilinimo vietos ir jos galimo kryžminio pokalbio bei konkurencijos dėl turimos vietos, poveikis gali skirtis. Lizino liekanos, kurias galima acetilinti ir metilinti, yra svarbios Tau funkcijai ir stabilumui, nes žinoma, kad acetilinimas yra susijęs su agreguotu Tau. Tau PHF, gauti iš AD smegenų, yra labai acetilinti keliose vietose. Apsauginė metilinimo nuo Tau agregacijos funkcija gali būti priskirta pirmenybei tokių vietų metilinimui. Tačiau lizino likučiai, tokie kaip K254, kurie gali būti metilinami ir ubikvitinuojami, pateikia kitokį scenarijų. Tokiais atvejais metilinimas gali trukdyti Tau skaidymui ir apykaitai ląstelėse, trukdydamas Tau proteasominiam skaidymui.

Cistanche papildai
Epigenetinis reguliavimas yra svarbus Alzheimerio ligos aspektas, nes žinoma, kad daugelio pagrindinių baltymų, tokių kaip APP, BACE1, presenilinai ir ApoE, ekspresijos lygis yra reguliuojamas epigenetiškai. Čia labai svarbus metilinimo, kaip genų represoriaus, vaidmuo per DNR metilinimą, taip pat chromatino remodeliavimas per histono lizino modifikaciją. Norint kontroliuoti genų transkripcijos lygius, reikalingas bendras ląstelių metilinimo potencialas. Sąlygos, skatinančios hipometilinimą, gali padidinti genų transkriptų kiekį ir taip padidinti baltymų kiekį. Baltymai, kurie tiesiogiai (APP, Tau ir Presenilinai) arba netiesiogiai (BACE1 ir įvairios kitos kinazės) dalyvauja AD progresavime, yra reguliuojami, todėl pusiausvyra pasikeičia ligos progresavimo link. Be to, fermentai, dalyvaujantys apsauginėje funkcijoje, tokie kaip PP2A, yra reguliuojami metilinant. Sumažėjus metilinimui ląstelėse, PP2A slopinimas sukelia padidėjusį ir nenormalų fosforilinimo lygį, įskaitant Tau hiperfosforilinimą.
Metilinimas tiesiogiai dalyvauja Tau reguliavime, taip pat epigenetiniuose mechanizmuose, o hipometilinimo būsena ląstelėse yra vienas iš priežastinių veiksnių. Yra sudėtinga pusiausvyra tarp universalaus metilo grupės donoro SAM ir jo atitikmens SAH, kuris lemia bendrą metilinimo potencialą. Metilo grupės metabolizmo disbalansą gali sukelti vidiniai ir išoriniai veiksniai, dėl kurių sumažėja SAM: SAH santykis ir sumažėja metilinimo potencialas. Tokiais atvejais homocisteino kiekis plazmoje yra labai padidėjęs, kuris ilgą laiką buvo naudojamas kaip širdies sveikatos žymuo. Tačiau nustatyta, kad jo lygis taip pat yra padidėjęs neurodegeneracinėmis sąlygomis, o tai rodo svarbų metilinimo vaidmenį.
Metilinimas gali būti genų ekspresijos represorius arba aktyvatorius, priklausomai nuo histono lizino modifikacijos vietos [131]. Specifinių DNMT inhibitorių skyrimas gali padėti palengvinti patologines sąlygas, atsirandančias dėl hipermetilinimo. Hipoksinės sąlygos žievės ir hipokampo neuronuose padidino H3K9Me2 ir sumažino H3 acetilinimą neprilizino promotoriuje, todėl jo reguliavimas sumažėjo. Sumažėjęs neprilizino kiekis skatina amiloido apnašų kaupimąsi, nes jis veikia kaip A skaidantis fermentas [132]. Diazepinkvinazolino-amino darinys-BIX-01294 yra DNMT inhibitorius, specifiškai veikiantis metilo transferazę G9a [133]. Buvo pranešta, kad gydymas BIX-01294 padidina sinapsinį plastiškumą amiloidinės žiurkės modelyje [134]. Tačiau dauguma metilinimo inhibitorių arba moduliatorių, tokių kaip decitabinas (DAC) ir azacitidinas (AZA), yra nespecifiniai ir turi visuotinį genomo poveikį [135]. Taigi, norint sukurti terapines strategijas, pageidautina naudoti inhibitorius arba moduliatorius, kurie yra specifiniai agentai, galintys palaikyti metilinimo potencialą.
Mitybos įpročiai ir terapinė intervencija gali padėti atkurti normalų homocisteino kiekį, taigi ir metilinimo potencialą. Kadangi metilinimas dalyvauja ir tiesiogiai kaip Tau modifikatorius, ir netiesiogiai kaip epigenetinis AD moduliatorius; tai gali pasirodyti esąs svarbus terapinis taikinys ligų prevencijai. Alzheimerio liga yra susijusi su mažesniu SAM lygiu, kaip matyti AD smegenyse [136, 137]. Sergant AD, akivaizdūs vienos anglies metabolizmo pokyčiai, apimantys metilinimą, o tai trukdo pasauliniam metilinimo potencialui. Sumažėjęs metilinimo potencialas savo ruožtu sukelia bendrą hipometilinimą. Hipometilinta neuronų būsena yra susijusi su Tau agregacija, padidėjusia presenilino ekspresija ir amiloidų kaupimu [138, 139]. Taigi, terapinės strategijos, kuriomis siekiama papildyti sumažėjusį metilinimo potencialą neuronuose, gali būti naudingos gydant AD (5 pav.). Nustatyta, kad SAM skyrimas 3xTg-AD pelėms buvo veiksmingas prieš amiloido ir Tau patologiją ir pagerina su tokiais veiksniais susijusius veiksnius, kaip genetinis polinkis ir oksidacinis stresas [140, 141].
Natūralūs junginiai, galintys moduliuoti DNR metilinimo būseną, gali būti papildomas būdas palengvinti patologinius AD požymius. Pavyzdžiui, epigallokatechin-3-galatas (EGCG) konkurenciškai slopina DNMT1 ir sukelia pakartotinę geno ekspresiją, nutildomą per DNMT1-sukeliamą metilinimą [142–144]. Yra ir kitų mažų natūralios kilmės molekulių, tokių kaip naringinas, apigeninas, liuteolinas, kurkuminas, genisteinas ir kt., kurios turi vidutinį poveikį DNR metilinimui [144–146].

Nuorodos
1. Agorogiannis E, Agorogiannis G, Papadimitriou A, Hadjigeorgiou G. Protein misfolding sergant neurodegeneracinėmis ligomis. Neuropathol Appl Neurobiol. 2004;30:215–24.
2. Dehmelt L, Halpain S. MAP2/Tau šeima su mikrotubuliais susijusių baltymų. Genome Biol. 2005;6:1–10.
3. Terwel D, Dewachter I, Van Leuven F. Aksonų pernešimas, tau baltymas ir neurodegeneracija sergant Alzheimerio liga. Neuro Mol Med. 2002;2:151–65.
4. Sonawane SK, Chinnathambi S. Į prionus panašus potransliaciniu būdu modifikuoto tau plitimas sergant Alzheimerio liga: hipotezė. J Mol Neurosci. 2018;65:480–90.
5. Gorantla NV, Chinnathambi S. Tau baltymas, išskirtas molekulinių chaperonų sergant Alzheimerio liga. J Mol Neurosci. 2018;66:356–68.
6. Gorantla NV, Chinnathambi S. Autofaginiai keliai tau agregatams išvalyti sergant Alzheimerio liga. Ląstelė Mol Neurobiol. 2020;8:1–7.
7. Ellmer D, Brehs M, Haj-Yahya M, Lashuel HA, Becker CF. Pavienės potransliacinės modifikacijos centriniuose Tau4 kartotiniuose domenuose daro įtaką jo agregacijai ir tubulino surišimui. Angew Chem Int Red. 2019;58:1616–20.
8. Ercan-Herbst E, Ehrig J, Schöndorf DC, Behrendt A, Klaus B, Ramos BG, Oriol NP, Weber C, Ehrnhoefer DE. Posttransliacinės modifikacijos parašas apibrėžia tirpaus tau pokyčius, koreliuojančius su oligomerizacija ankstyvosios Alzheimerio ligos stadijos smegenyse. Acta Neuropathol Commun. 2019;7:1–19.
9. Martin L, Latypova X, Terro F. Tau baltymo post-transliacinės modifikacijos: pasekmės Alzheimerio ligai. Neurochem Int. 2011;58:458–71.
10. Alonso ADC, Grundke-Iqbal I, Iqbal K. Alzhaimerio liga hiperfosforilintas tau suskiria normalų tau į gijų raizginius ir išardo mikrovamzdelius. Nat Med. 1996;2:783–7.
11. Johnson GV, Stoothof WH. Tau fosforilinimas neuronų ląstelių funkcijoje ir disfunkcijoje. J Cell Sci. 2004;117:5721–9.
12. Brandt R, Trushina NI, Bakota L, Mulkidjanian AY. Tau fosforilinimo ir sąveikos raida. Priekinės senėjimo neurozės. 2019; 11:256.
13. Yu Y, Run X, Liang Z, Li Y, Liu F, Liu Y, Iqbal K, Grundke-Iqbal I, Gong CX. Tau fosforilinimo, tau kinazių ir tau fosfatazių vystymosi reguliavimas. J Neurochem. 2009;108:1480–94.
14. Neddens J, Temmel M, Flunkert S, Kerschbaumer B, Hoeller C, Loefer T, Niederkofer V, Daum G, Attems J, Hutter-Paier B. Įvairių tau vietų fosforilinimas progresuojant Alzheimerio ligai. Acta Neuropathol Commun. 2018;6:52.
15. Šimić G, Babić Leko M, Wray S, Harrington C, Delalle I, Jovanov-Milošević N, Bažadona D, Buée L, De Silva R, Di Giovanni G. Tau baltymų hiperfosforilinimas ir agregacija sergant Alzheimerio liga ir kitomis tauopatijomis ir galimos neuroprotekcinės strategijos. Biomolekulės. 2016; 6:6.
16. Ishiguro K, Sato K, Takamatsu M, Park J, Uchida T, Imahori K. Tau fosforilinimo analizė antikūnais, specifiniais fosforilinimo vietoms. Neurosci Lett. 1995;202:81–4.
17. Goedert M, Jakes R, Crowther R, Cohen P, Vanmechelen E, Vandermeeren M, Cras P. Epitope mapping of monoclonal antibods to paired heliical filaments of Alzheimer's disease: Identification of phosphorylation sites in tau protein. Biochem J. 1994;301:871–7.
18. O'Neill C., Anderton B., Anderton BH, Betts J., Blackstock WP, Brion J.-P., Chapman S., Connell J., Dayanandan R., Gallo J.-M. Leidinyje Biochemical Society Symposia, vol. 67. „Portland Press“; 2001. 73–80 p.
19. Wagner U, Utton M, Gallo JM, Miller C. Ląstelinis tau fosforilinimas GSK-3 beta įtakoja tau prisijungimą prie mikrotubulių ir mikrotubulių organizavimą. J Cell Sci. 1996;109:1537–43.
20. Gong CX, Lidsky T, Wegiel J, Zuck L, Grundke-Iqbal I, Iqbal K. Su mikrotubuliais susieto baltymo tau fosforilinimą reguliuoja baltymo fosfatazė 2A žinduolių smegenyse, dėl neurofibrilinės degeneracijos sergant Alzheimerio liga. J Biol Chem. 2000;275:5535–44.
21. Liu F, Grundke-Iqbal I, Iqbal K, Gong CX. Baltymų fosfatazių PP1, PP2A, PP2B ir PP5 indėlis į tau fosforilinimo reguliavimą. Eur J Neurosci. 2005;22:1942–50.
22. Balmik AA, Sonawane SK, Chinnathambi S. Aktino tinklo ir tau fosforilinimo moduliavimas HDAC6 ZnF UBP domenu. BioRxiv, 702571; 2019 m.
23. Chen S, Li B, Grundke-Iqbal I, Iqbal K. I PP2A 1 veikia Tau fosforilinimą per ryšį su kataliziniu baltymo fosfatazės 2A subvienetu. J Biol Chem. 2008;283:10513–21.
24. Funk KE, Thomas SN, Schafer KN, Cooper GL, Liao Z, Clark DJ, Yang AJ, Kuret J. Lizino metilinimas yra endogeninė potransliacinė tau baltymo modifikacija žmogaus smegenyse ir agregacijos polinkio moduliatorius. Biochem J. 2014;462:77–88.
25. Thomas SN, Funk KE, Wan Y, Liao Z, Davies P, Kuret J, Yang AJ. Dvigubas Alzheimerio ligos PHF-tau baltymo modifikavimas lizino metilinimo ir ubikvitiliacijos būdu: masės spektrometrijos metodas. Acta Neuropathol. 2012;123:105–17.
26. Sontag E, Nunbhakdi-Craig V, Sontag JM, Diaz-Arrastia R, Ogris E, Dayal S, Lentz SR, Arning E, Bottiglieri T. Baltymų fosfatazės 2A metiltransferazė sieja homocisteino metabolizmą su tau ir amiloido pirmtakų baltymų reguliavimu. J Neurosci. 2007;27:2751–9.
27. Shirafuji N, Hamano T, Yen SH, Kanaan NM, Yoshida H, Hayashi K, Ikawa M, Yamamura O, Kuriyama M, Nakamoto Y. Homocisteinas padidina tau fosforilinimą, sutrumpinimą ir oligomerizaciją. Int J Mol Sci. 2018;19:891.
28. Bryantas JC, Westphal RS, Wadzinski BE. PP2A katalizinio subvieneto metilintas C-galinės leucino liekanos yra svarbios reguliuojančio B subvieneto surišimui. Biochem J. 1999;339:241–6.
29. Wang Y, Yang R, Gu J, Yin X, Jin N, Xie S, Wang Y, Chang H, Qian W, Shi J. Kryžminis pokalbis tarp PI3K-AKT-GSK-3 ir PP2A nustato tau hiperfosforilinimas. Neurobiol senėjimas. 2015;36:188–200.
30. Qian W, Shi J, Yin X, Iqbal K, Grundke-Iqbal I, Gong CX, Liu F. PP2A tiesiogiai ir netiesiogiai reguliuoja tau fosforilinimą aktyvindamas GSK-3. J Alzheimerio liga. 2010;19:1221–9.
31. Copeland RA, Solomon ME, Richon VM. Baltymų metiltransferazės kaip tikslinė vaistų atradimo klasė. Nat Rev narkotikų diskas. 2009;8:724–32.
32. Dillon SC, Zhang X, Trievel RC, Cheng X. SET domeno baltymų superšeima: baltymų lizino metiltransferazės. Genome Biol. 2005; 6:227.
33. Qian C, Zhou MM. SET domeno baltymo lizino metiltransferazės: struktūra, specifiškumas ir katalizė. Cell Mol Life Sci CMLS. 2006;63:2755–63.
34. Rathert P, Dhayalan A, Murakami M, Zhang X, Tamas R, Jurkowska R, Komatsu Y, Shinkai Y, Cheng X, Jeltsch A. Protein lysine methyltransferase G9a acts on non-histon targets. Nat Chem Biol. 2008;4:344–6.
35. Tamas R. Baltymų, atsakingų už ryškių lizino modifikacijų atsiradimą ir atpažinimą, tyrimas; 2014 m.
36. Gong CX, Liu F, Grundke-Iqbal I, Iqbal K. Post-translational modifikations of tau protein in Alzheimer's disease. J Neuroninis perdavimas. 2005;112:813–38.
37. Kontaxi C, Piccardo P, Gill AC. Lizinu nukreiptos tau baltymo modifikacijos po transliacijos sergant Alzheimerio liga ir susijusiomis tauopatijomis. Priekyje Mol Biosci. 2017; 4:56.
38. Min SW, Chen X, Tracy TE, Li Y, Zhou Y, Wang C, Shirakawa K, Minami SS, Defensor E, Mok SA. Kritinis acetilinimo vaidmuo tau sukeltoje neurodegeneracijoje ir pažinimo deficituose. Nat Med. 2015;21:1154–62.
39. Min SW, Cho SH, Zhou Y, Schroeder S, Haroutunian V, Seeley WW, Huang EJ, Shen Y, Masliah E, Mukherjee C. Tau acetilinimas slopina jo skaidymą ir prisideda prie tauopatijos. Neuronas. 2010;67:953–66.
40. Bichmann M, Oriol NP, Ercan-Herbst E, Schöndorf DC, Ramos BG, Schwaerzler V, Haberkant P, Gasparini L, Ehrnhoefer DE. SETD7-tarpininkaujamas lizino monometilinimas yra gausus nehiperfosforilintame branduoliniame Tau. bioRxiv; 2020 m.
41. Morris M, Knudsen GM, Maeda S, Trinidad JC, Ioanoviciu A, Burlingame AL, Mucke L. Tau potransliacinės modifikacijos laukinio tipo ir žmogaus amiloido pirmtako baltymo transgeninėse pelėse. Nat Neurosci. 2015;18:1183–9.
42. Brandt R, Léger J, Lee G. Tau sąveika su nervine plazmine membrana, tarpininkaujant tau amino galo projekcijos domenui. J Cell Biol. 1995;131:1327–40.
43. Sultan A, Nesslany F, Violet M, Bégard S, Loyens A, Talahari S, Mansuroglu Z, Marzin D, seržantas N, Humez S. Branduolinis tau, pagrindinis neuronų DNR apsaugos veikėjas. J Biol Chem. 2011;286:4566–75.
44. Park SY, Ferreira A. 17 kDa neurotoksinio fragmento generavimas: alternatyvus mechanizmas, kuriuo tau tarpininkauja amiloido sukeltai neurodegeneracijai. J Neurosci. 2005;25:5365–75.
45. Amadoro G, Ciotti MT, Costanzi M, Cestari V, Calissano P, Canu N. NMDA receptorius tarpininkauja tau sukeltam neurotoksiškumui kalpainu ir ERK/MAPK aktyvinimu. Proc Natl Acad Sci. 2006;103:2892–7.
46. Reinecke JB, DeVos SL, McGrath JP, Shepard AM, Goncharov DK, Tait DN, Fleming SR, Vincentas MP, Steinhilb ML. Kalpaino įtraukimas į tau sukeltą toksiškumą in vivo. PLoS ONE. 2011;6:e23865.
47. Nealas M, Richardsonas JR. Epigenetinis astrocitų funkcijos reguliavimas neurouždegimo ir neurodegeneracijos metu. Biochimica et Biophysica Acta Mol Basis Dis. 2018;1864:432–43.
48. Mastroeni D, Grover A, Delvaux E, Whiteside C, Coleman PD, Rogers J. Epigenetiniai Alzheimerio ligos pokyčiai: DNR metilinimo sumažėjimas. Neurobiol senėjimas. 2010;31:2025–37.
49. Mastroeni D, McKee A, Grover A, Rogers J, Coleman PD. Epigenetiniai žievės neuronų skirtumai iš monozigotinių dvynių poros, nesuderinamos su Alzheimerio liga. PLoS ONE. 2009;4:e6617.
50. Tulloch J, Leong L, Thomson Z, Chen S, Lee EG, Keene CD, Millard SP, Yu CE. Glia specifiniai APOE epigenetiniai pokyčiai Alzheimerio ligos smegenyse. Brain Res. 2018; 1698:179–86.
51. Cheray M, Joseph B. Epigenetika kontroliuoja mikroglijos plastiškumą. Priekinių ląstelių neurozės. 2018;12:243.
52. Das R, Chinnathambi S. Antigeno pateikimo mikroglialinis pradėjimas ir adaptyvioji stimuliacija sergant Alzheimerio liga. Cell Mol Life Sci. 2019;6:1–14.
53. Mano T, Nagata K, Nonaka T, Tarutani A, Imamura T, Hashimoto T, Bannai T, Koshi-Mano K, Tsuchida T, Ohtomo R. Neuronams būdinga metilo analizė atskleidžia epigenetinį reguliavimą ir su tau susijusią BRCA1 disfunkciją. Alzheimerio liga. Proc Natl Acad Sci. 2017;114:E9645–54.
54. Urdinguio RG, Sanchez-Mut JV, Esteller M. Neurologinių ligų epigenetiniai mechanizmai: genai, sindromai ir terapija. Lancet Neurol. 2009;8:1056–72.
55. Jakovcevski M, Akbarian S. Neurologinių ligų epigenetiniai mechanizmai. Nat Med. 2012;18:1194–204.
56. Holliday R. DNR metilinimas ir epigenetiniai mechanizmai. Ląstelių biofizė. 1989;15:15–20.
57. Fuks F. DNR metilinimas ir histonų modifikacijos: susivienijimas siekiant nutildyti genus. Curr Opin Genet Dev. 2005;15:490–5.
58. Illingworth RS, Gruenewald-Schneider U, Webb S, Kerr AR, James KD, Turner DJ, Smith C, Harrison DJ, Andrews R, Bird AP. Našlaičių CpG salos identifikuoja daugybę konservuotų promotorių žinduolių genome. PLoS Genet. 2010;6:e1001134.
59. Murakami K, Kojima T, Sakaki Y. Transkripcijos faktoriaus surišimo vietų apie žmogaus promotorių, CpG salas ir genų ekspresiją sankaupų įvertinimas. BMC Genom. 2004; 5:16.
60. Liu Y, Wang M, Marcora EM, Zhang B, Goate AM. Promoterio DNR hipermetilinimas – pasekmės Alzheimerio ligai. Neurosci Lett. 2019;711:134403.
61. Bradley-Whitman M, Lovell M. Epigenetiniai Alzheimerio ligos progresavimo pokyčiai. Mech Aging Dev. 2013;134:486–95.
62. Fu Y, He C. Nukleino rūgščių modifikacijos, turinčios epigenetinę reikšmę. Curr Opin Chem Biol. 2012;16:516–24.
63. Kriaucionis S, Bird A. DNR metilinimas ir Retto sindromas. Hum Mol Genet. 2003;12:R221–7.
64. Woodcock D, Crowther P, Diver W. Daugumos metilintų deoksicitidinų žmogaus DNR nėra CpG dinukleotide. Biochem Biophys Res Commun. 1987;145:888–94.
65. Ziller MJ, Müller F, Liao J, Zhang Y, Gu H, Bock C, Boyle P, Epstein CB, Bernstein BE, Lengauer T. Genominis pasiskirstymas ir ne CpG metilinimo skirtumai tarp mėginių tarp žmogaus ląstelių tipų. PLoS Genet. 2011;7:e1002389.
66. Robertsonas KD. DNR metilinimas ir žmogaus ligos. Nat Rev Genet. 2005;6:597–610.
67. Moore LD, Le T, Fan G. DNR metilinimas ir jo pagrindinė funkcija. Neuropsichofarmakologija. 2013;38:23–38.
68. Al-Mahdawi S, Virmouni SA, Pook MA. Epigenetiniai biomarkeriai ir diagnostika. Amsterdamas: Elsevier; 2016. p. 401–15.
69. Fedotova EY, Illarioshkin S. DNR metilinimas sergant neurodegeneracinėmis ligomis. Russ J Genet. 2019;55:271–7.
70. Bakulski KM, Dolinoy DC, Sartor MA, Paulson HL, Konen JR, Lieberman AP, Albin RL, Hu H, Rozek LS. Viso genomo DNR metilinimo skirtumai tarp vėlyvos Alzheimerio ligos ir kognityviai normalios žmogaus priekinės žievės kontrolės. J Alzheimerio liga. 2012;29:571–88.
71. Rao J, Keleshian V, Klein S, Rapoport S. Epigenetinės modifikacijos Alzheimerio liga ir bipoliniu sutrikimu sergančių pacientų priekinėje žievėje. Išversti psichiatrija. 2012; 2:e132.
72. Coppieters N, Dragunow M. Alzheimerio ligos epigenetika: dėmesys DNR modifikacijoms. Curr Pharm Des. 2011;17:3398–412.
73. Li P, Marshall L, Oh G, Jakubowski JL, Groot D, He Y, Wang T, Petronis A, Labrie V. Epigenetinis stiprintuvų reguliavimas neuronuose yra susijęs su Alzheimerio ligos patologija ir kognityviniais simptomais. Nat Commun. 2019;10:1–14.
74. Pogribny IP, Beland FA. DNR hipometilinimas žmogaus ligų kilme ir patogenezėje. Cell Mol Life Sci. 2009;66:2249–61.
75. Fan G, Beard C, Chen RZ, Csankovszki G, Sun Y, Siniaia M, Biniszkiewicz D, Bates B, Lee PP, Kühn R. DNR hipometilacija trikdo CNS neuronų funkciją ir išgyvenimą postnataliniuose gyvūnuose. J Neurosci. 2001;21:788–97.
76. jos N, McKenzie C, Garrett R, Baker M, Fox N, Isaacs GD. Amiloidas pakeičia ląstelių likimo genų DNR metilinimo būseną Alzheimerio ligos modelyje. J Alzheimerio liga. 2014;38:831–44.
77. Kandalepas PC, Sadleir KR, Eimer WA, Zhao J, Nicholson DA, Vassar R. Alzheimerio sekreto BACE1 lokalizuojasi normaliuose presinapsiniuose galuose ir distrofiniuose presinapsiniuose galuose, supančiais amiloidines plokšteles. Acta Neuropathol. 2013;126:329–52.
78. Fischer A, Sananbenesi F, Wang X, Dobbin M, Tsai LH. Mokymosi ir atminties atkūrimas yra susijęs su chromatino remodeliavimu. Gamta. 2007;447:178–82.
79. McShea A, Lee HG, Petersen RB, Casadesus G, Vincentas I, Linford NJ, Funk JO, Shapiro RA, Smith MA. Neuronų ląstelių ciklo pakartotinis įėjimas tarpininkauja Alzheimerio ligos tipo pokyčiams. Biochimica et Biophysica Acta Mol Basis Dis. 2007;1772:467–72.
80. Lee KY, Clark AW, Rosales JL, Chapman K, Fung T, Johnston RN. Padidėjęs neuronų Cdc2-kaip kinazės aktyvumas Alzheimerio ligos smegenyse. Neurosci Res. 1999;34:21–9.
81. Sanchez-Mut JV, Heyn H, Vidal E, Moran S, Sayols S, Delgado-Morales R, Schultz MD, Ansoleaga B, Garcia-Esparcia P, Pons-Espinal M. Neurodegeneracinių ligų žmogaus DNR metilomos rodo bendrus epigenominius modelius . Išversti psichiatrija. 2016;6:e718–e718.
82. Lu H, Liu X, Deng Y, Qing H. DNR metilinimas, neurodegeneracinių ligų priežastis. Priekinės senėjimo neurozės. 2013;5:85.
83. Wen KX, Milic J, El-Khodor B, Dhana K, Nano J, Pulido T, Kraja B, Zaciragic A, Bramer WM, Troup J. DNR metilinimo ir histono modifikacijų vaidmuo neurodegeneracinėse ligose: sisteminė apžvalga. PLoS ONE. 2016;11:e0167201.
84. Sanchez-Mut JV, Aso E, Panayotis N, Lott I, Dierssen M, Rabano A, Urdinguio RG, Fernandez AF, Astudillo A, Martin-Subero JI. Pelės ir žmogaus smegenų DNR metilinimo žemėlapis nustato tikslinius Alzheimerio ligos genus. Smegenys. 2013;136:3018–27.
85. Bollati V, Galimberti D, Pergola L, Dalla Valle E, Barretta F, Cortini F, Scarpini E, Bertazzi P, Baccarelli A. DNR metilinimas pasikartojančiuose elementuose ir Alzheimerio liga. Smegenų elgesio imunitetas. 2011;25:1078–83.
86. Goldbaum O, Richter C. Ligos neurobiologija proteolitinis stresas sukelia šilumos šoko baltymų indukciją, tau ubikvitinaciją ir ubikvitino pritraukimą į tau teigiamus agregatus oligodendrocituose kultūroje; 2004 m.
87. Kosik KS, Shimura H. Fosforilintas tau ir neurodegeneracinės ciliopatijos. Biochimica et Biophysica Acta Mol Basis Dis. 2005;1739:298–310.
88. Arnaud L, Robakis NK, Figueiredo-Pereira ME. Gali prireikti uždegimo, fosforilinimo ir ubikvitinacijos, kad susipainiotų su Alzheimerio liga. Neurodegenerinis Dis. 2006;3:313–9.
89. Bancher C, Brunner C, Lassmann H, Budka H, Jellinger K, Wiche G, Seitelberger F, Grundke-Iqbal I, Iqbal K, Wisniewski H. Nenormaliai fosforilinto τ kaupimasis vyksta prieš neurofibrilinių raizginių susidarymą Alzheimerio ligos atveju. Brain Res. 1989;477:90–9.
90. Bancher C, Grundke-Iqbal I, Iqbal K, Fried V, Smith H, Wisniewski H. Nenormalus tau fosforilinimas yra prieš ubikvitinaciją Alzheimerio ligos neurofibrilinėje patologijoje. Brain Res. 1991;539:11–8.
91. Yang XJ, Seto E. Lizino acetilinimas: kodifikuotas perkalbėjimas su kitomis posttransliacinėmis modifikacijomis. Mol Cell. 2008;31:449–61.
92. Cook C, Carlomagno Y, Gendron TF, Dunmore J, Schefel K, Stetler C, Davis M, Dickson D, Jarpe M, DeTure M. KXGS motyvų acetilinimas tau yra svarbus veiksnys moduliuojant tau agregaciją ir klirensą . Hum Mol Genet. 2014;23:104–16.
93. Dorval V, Fraser PE. Mažas į ubikvitiną panašus modifikatorius (SUMO) natūraliai išsiskleidusių baltymų tau ir -sinukleino modifikacija. J Biol Chem. 2006;281:9919–24.
94. Luo HB, Xia YY, Shu XJ, Liu ZC, Feng Y, Liu XH, Yu G, Yin G, Xiong YS, Zeng K. SUMOilinimas ties K340 slopina tau degradaciją, panaikindamas jo fosforilinimą ir ubikvitinaciją. Proc Natl Acad Sci. 2014;111:16586–91.
95. Finkelšteinas JD. S-adenozilmetionino ir S-adenozilhomocisteino metabolizmo reguliavimo savybės. Clin Chem Lab Med. 2007;45:1694–9.
96. Loenen W. Portland Press Ltd., 2006 m.
97. Obeid R, Herrmann W. Homocisteinas ir lipidai: S-adenozilmetioninas kaip pagrindinis tarpinis produktas. FEBS Lett. 2009;583:1215–25.
98. Joseph J, Loscalzo J. Metoksistazė: homocisteino ir folio rūgšties vaidmenų integravimas širdies ir kraujagyslių patobiologijoje. Maistinių medžiagų. 2013;5:3235–56.
99. Williams KT, Schalinske KL. Naujos įžvalgos apie metilo grupės ir homocisteino metabolizmo reguliavimą. J Nutr. 2007;137:311–4.
100. Bottiglieri T, Hyland K, Reynolds EH. Klinikinis ademetionino (S-adenozilmetionino) potencialas sergant neurologiniais sutrikimais. Narkotikai. 1994;48:137–52.
101. Vaillant I, Paszkowski J. Histono ir DNR metilinimo vaidmuo genų reguliavime. Curr Opin Plant Biol. 2007;10:528–33.
102. Razin A, Cedar H. DNR metilinimas ir genų ekspresija. Microbiol Mol Biol Rev. 1991;55:451-8.
103. Milleris AL. Metilinimas, neurotransmiteris ir antioksidacinis ryšys tarp folio rūgšties ir depresijos. Alternatyva Med Rev. 2008;13:3.
104. Rosengarten H, Friedhof AJ. Naujausių haliucinogenų, susidarančių metilinant neuromediatorius ar susijusias medžiagas, biosintezės ir išskyrimo tyrimų apžvalga. Schizophr Bull. 1976; 2:90.
105. Hirata F, Axelrod J. Fosfolipidų metilinimas ir biologinio signalo perdavimas. Mokslas. 1980;209:1082–90.
106. Pascale R, Pirisi L, Daino L, Zanetti S, Satta A, Bartoli E, Feo F. Role of phosphatidylethanolamine methylation in the synthesis of phosphatidylcholine by hepatocytes izolated from cholin-deficent žiurkių. FEBS Lett. 1982;145:293–7.
107. Kim S, Lim IK, Park GH, Paik WK. Biologinis mielino bazinio baltymo metilinimas: enzimologija ir biologinė reikšmė. Int J Biochem Cell Biol. 1997;29:743–51.
108. Zarazúa S, Ríos R, Delgado JM, Santoyo ME, Ortiz-Pérez D, JiménezCapdeville ME. Sumažėjęs arginino metilinimas ir mielino pokyčiai arseno paveiktose žiurkėse. Neurotoksikologija. 2010;31:94–100.
109. Planel E, Yasutake K, Fujita SC, Ishiguro K. Baltymų fosfatazės 2A slopinimas viršija tau baltymo kinazės I/glikogeno sintazės kinazės 3 ir nuo ciklino priklausomos kinazės 5 slopinimą ir sukelia tau hiperfosforilinimą badaujančio hipokampo hipokampe. J Biol Chem. 2001;276:34298–306.
110. Vafai SB, Stock JB. Baltymų fosfatazės 2A metilinimas: ryšys tarp padidėjusio homocisteino kiekio plazmoje ir Alzheimerio ligos. FEBS Lett. 2002;518:1–4.
111. Janssens V, Goris J. Baltymų fosfatazė 2A: labai reguliuojama serino/treonino fosfatazių šeima, susijusi su ląstelių augimu ir signalizavimu. Biochem J. 2001;353:417–39.
112. Sontag E, Nunbhakdi-Craig V, Lee G, Brandt R, Kamibayashi C, Kuret J, White CL, Mumby MC, Bloom GS. Molekulinės sąveikos tarp baltymų fosfatazės 2A, tau ir mikrotubulių Poveikis tau fosforilinimo reguliavimui ir tauopatijų vystymuisi. J Biol Chem. 1999;274:25490–8.
113. Tolstych T, Lee J, Vafai S, Stock JB. Karboksilo metilinimas reguliuoja fosfoproteino fosfatazę 2A, kontroliuodamas reguliuojančių B subvienetų susiejimą. EMBO J. 2000;19:5682–91.
114. De La Haba G, Cantoni G. S-adenozil-L-homocisteino fermentinė sintezė iš adenozino ir homocisteino. J Biol Chem. 1959;234:603–8.
115. Yi P, Melnyk S, Pogribna M, Pogribny IP, Hine RJ, James SJ. Homocisteino koncentracijos plazmoje padidėjimas, susijęs su lygiagrečiu S-adenozilhomocisteino ir limfocitų DNR hipometilinimo padidėjimu plazmoje. J Biol Chem. 2000;275:29318–23.
116. Tchantchou F, Graves M, Ortiz D, Chan A, Rogers E, Shea T. S-adenozilo metioninas: ryšys tarp mitybos ir genetinių Alzheimerio ligos neurodegeneracijos rizikos veiksnių. J Nutr Sveikata Senėjimas. 2006;10:541.
117. Bottiglieri T. Folio rūgštis, vitaminas B12 ir S-adenozilmetioninas. Psichiatrijos klinika. 2013;36:1–13.
118. Sreckovic B, Sreckovic VD, Soldatovic I, Colak E, Sumarac-Dumanovic M, Janeski H, Janeski N, Gacic J, Mrdovic I. Homocisteinas yra metabolinio sindromo ir aterosklerozės žymuo. Diabeto metabo sindromas. 2017;11:179–82.
119. Schalinske KL, Smazal AL. Homocisteino disbalansas: patologinis medžiagų apykaitos žymuo. Adv Nutr. 2012; 3:755–62.
120. Chaava M, Tsh B, Tsh S. Homocisteinas kaip širdies ir kraujagyslių ligų rizikos žymuo. Gruzijos medicinos naujienos. 2005;5:65–70.
121. Obeid R, Herrmann W. Homocisteino neurotoksiškumo mechanizmai sergant neurodegeneracinėmis ligomis, ypač atsižvelgiant į demenciją. FEBS Lett. 2006;580:2994–3005.
122. Herrmann W, Obeid R. Homocisteinas: neurodegeneracinių ligų biomarkeris. Clin Chem Lab Med. 2011;49:435–41.
123. Lehmann M, Gottfried C, Regland B. Pagyvenusių žmonių pažinimo sutrikimo nustatymas: homocisteinas yra ankstyvas žymeklis. Dementinis Geriatro pažinimo sutrikimas. 1999;10:12.
124. Moretti R, Caruso P. Prieštaringas homocisteino vaidmuo neurologijoje: nuo laboratorijų iki klinikinės praktikos. Int J Mol Sci. 2019; 20:231.
125. Hofman M. Hipotezė: hiperhomocisteinemija yra oksidacinio streso rodiklis. Med hipotezės. 2011;77:1088–93.
126. Stühlinger MC, Tsao PS, Her JH, Kimoto M, Balint RF, Cooke JP. Homocisteinas pažeidžia azoto oksido sintazės kelią: asimetrinio dimetilarginino vaidmuo. Tiražas. 2001;104:2569–75.
127. Morris MS. Homocisteinas ir Alzheimerio liga. Lancet Neurol. 2003;2:425–8.
128. Leulliot N, Quevillon-Cheruel S, Sorel I, de La Sierra-Gallay IL, Collinet B, Graille M, Blondeau K, Bettache N, Poupon A, Janin J. Baltymų fosfatazės metiltransferazės 1 (PPM1), leucino struktūra karboksilmetiltransferazė, dalyvaujanti reguliuojant baltymo fosfatazės 2A aktyvumą. J Biol Chem. 2004;279:8351–8.
129. Wang JZ, Gong CX, Zaidi T, Grundke-Iqbal I, Iqbal K. Alzheimerio suporuotų spiralinių gijų defosforilinimas naudojant baltymų fosfatazę -2A ir - 2B. J Biol Chem. 1995;270:4854–60.
130. Kruman II, Kumaravel T, Lohani A, Pedersen WA, Cutler RG, Kruman Y, Haughey N, Lee J, Evans M, Mattson MP. Folio rūgšties trūkumas ir homocisteinas pablogina DNR taisymą hipokampo neuronuose ir jautrina juos amiloido toksiškumui eksperimentiniuose Alzheimerio ligos modeliuose. J Neurosci. 2002;22:1752–62.
131. Medienos IC. Epigenetinių modifikacijų indėlis ir terapinis potencialas sergant Alzheimerio liga. Priekiniai neuronai. 2018;12:649.
132. Wang Z, Yang D, Zhang X, Li T, Li J, Tang Y, Le W. Hipoksijos sukeltas neprilizino reguliavimas histono modifikavimu pelės pirminiuose žievės ir hipokampo neuronuose. PLoS ONE. 2011;6:e19229.
133. Kubicek S, O'Sullivan RJ, August EM, Hickey ER, Zhang Q, Teodoro ML, Rea S, Mechtler K, Kowalski JA, Homon CA. H3K9me2 panaikinimas mažos molekulės G9a histono metiltransferazės inhibitoriumi. Mol Cell. 2007;25:473–81.
134. Sharma M, Dierkes T, Sajikumar S. Epigenetinis reguliavimas G9a/GLP kompleksu pagerina amiloido-beta 1–42 sukeltą ilgalaikio plastiškumo ir sinapsinio žymėjimo/fiksavimo trūkumą hipokampo piramidiniuose neuronuose. Senėjimo ląstelė. 2017;16:1062–72.
135. Neja SA. Konkrečios vietos DNR demetilinimas kaip galimas vėžio epigenetinės terapijos taikinys. Epigenetikos įžvalgos. 2020;13:2516865720964808.
136. Morrison LD, Smith DD, Kish SJ. Smegenų S-adenozilmetionino kiekis smarkiai sumažėja sergant Alzheimerio liga. J Neurochem. 1996;67:1328–31.
137. Linnebank M, Popp J, Smulders Y, Smith D, Semmler A, Farkas M, Kulic L, Cvetanovska G, Blom H, Stofel-Wagner B. S-adenosylmetionino yra sumažintas Alzheimerio liga sergančių pacientų smegenų skystyje. Neurodegenerinis Dis. 2010;7:373–8.
138. Fuso A, Nicolia V, Cavallaro RA, Ricceri L, D'Anselmi F, Coluccia P, Calamandrei G, Scarpa S. B grupės vitaminų trūkumas sukelia hiperhomocisteinemiją ir smegenų S-adenozilhomocisteiną, mažina smegenų S-adenozilmetionino kiekį ir padidina PS1. BACE ekspresija ir amiloido nusėdimas pelėse. Mol Cell Neurosci. 2008;37:731–46.
139. Cavallaro RA, Nicolia V, Fiorenza MT, Scarpa S, Fuso A. S-adenozilmetioninas ir superoksido dismutazė 1 sinergiškai neutralizuoja Alzheimerio ligos ypatybes TgCRND8 pelėse. Antioksidantai. 2017; 6:76.
140. Shea TB, Chan A. S-adenozilmetioninas: natūralus terapinis agentas, veiksmingas prieš daugelį su Alzheimerio liga susijusių požymių ir rizikos veiksnių. J Alzheimerio liga. 2008;13:67–70.
141. Lee S, Lemere CA, Frost JL, Shea TB. Maisto papildymas S-adenozilmetioninu atitolino amiloido ir tau patologiją 3xTgAD pelėms. J Alzheimerio liga. 2012;28:423–31.
142. Berletch JB, Liu C, Love WK, Andrews LG, Katiyar SK, Tollefsbol TO. Epigenetiniai ir genetiniai mechanizmai prisideda prie telomerazės slopinimo EGCG. J Cell Biochem. 2008;103:509–19.
143. Kato K, Long NK, Makita H, Toida M, Yamashita T, Hatakeyama D, Hara A, Mori H, Shibata T. Žaliosios arbatos polifenolio poveikis RECK geno metilinimo būsenai ir vėžio ląstelių invazijai burnos plokščiųjų ląstelių karcinomos atveju ląstelės. Br J Vėžys. 2008;99:647–54.
144. Lee WJ, Shim JY, Zhu BT. DNR metiltransferazių slopinimo arbatos katechinais ir bioflavonoidais mechanizmai. Mol Pharmacol. 2005;68:1018–30.
145. Fang M, Chen D, Yang CS. Dietiniai polifenoliai gali paveikti DNR metilinimą. J Nutr. 2007;137:223S-228S.
146. Mukherjee N, Kumar AP, Ghosh R. DNR metilinimas ir flavonoidai sergant šlapimo takų vėžiu. Curr Pharmacol Rep. 2015;1:1 12–20.
Abhishek Ankur Balmik1,2 ir Subashchandrabose Chinnathambi1,2.
1. Neurobiologijos grupė, Biochemijos mokslų skyrius, CSIR-National Chemical Laboratory (CSIR-NCL), Dr. Homi Bhabha Road, 411008, Puna, Indija.
2. Mokslinių ir naujoviškų tyrimų akademija (AcSIR), Ghaziabad 201002, Indija.


