

Konservuota ilga nekoduojanti RNR, GAPLINC, moduliuoja imuninį atsaką endotoksinio šoko metu
Jun 10, 2022
Norėdami sužinoti daugiau informacijos, susisiekitedavid.wan@wecistanche.com
Reikšmė
Uždegimas daugiausia buvo tiriamas baltymus koduojančių genų kontekste. Naujausi tyrimai atskleidė IncRNR kaip svarbius imuniteto reguliatorius. Šių genų funkcinis apibūdinimas išlieka aktyvia tyrimų sritimi. Šiame tyrime GAPLINC nustatome kaip funkciškai konservuotąIncRNAtarp žmonių ir pelių. GAPLINC išeikvojimas padidina imuninio atsako genų, kurie yra tiesioginiai, ekspresijąNF-kBtikslus. Stebėtina, kad Gaplinc išmuštos pelės pasižymi atsparumu LPS sukeltam endotoksiniam šokui ir nustato, kad bazinė uždegiminių genų ekspresija neleidžia susidaryti taškams, kad apsaugotų nuo daugelio organų nepakankamumo ir mirties. Šios išvados turi įtakos sepsio gydymui, kai nauji gydymo būdai, nukreipti į IncRNR, gali padėti suprasti uždegimą ir pagerinti paciento rezultatus.

Spustelėkite čia, kad sužinotumėte daugiau apie Cistanche
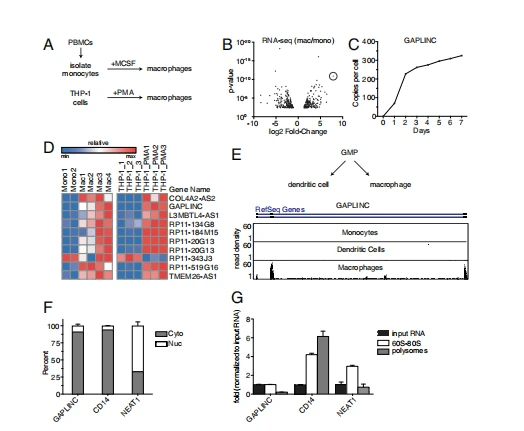
FG 1. specifinių makrofagų identifikavimas ir apibūdinimasIncRNA GAPLINC. (A) A schematic for macrophage differentiation in vitro using primary human celeb or immortalized THP-1 cells, Isolated monocytes from human P8MCs are differentiated into macrophages using recombinant magnon stimulating factor. PHP-1 cells are differentiated into macrophages by treatment with PMA (100 nM). (8)RNA-Seg analysis on macrophages differentiated from monocytes isolated from human PBMCs (n = 4 donors). Results are represented in a volcano plot. GAPUNC (shown in red) is the most up-regulated and RNA (>1,000-fok). (C) RNR-Seq analizėGAPLNCekspresija diferencijuojant monocitus į makrofagus nurodytais laiko momentais. GAPLINC ekspresija pavaizduota kaip kopijos vienoje ląstelėje (FPKM. (D) Šilumos žemėlapis vaizduoja genų ekspresiją iš tinkintos nanostringo skydelio, kuriame parodyta 10 geriausių skirtingai išreikštų InciNA, lyginančių monocitus su makrofagais pirminės žmogaus ląstelės ir THP-1 ląstelės. Duomenys iš Nanotring buvo atlikti biologiniais dublikatais. (E) Granulocitų-monocitų progenitorinių ląstelių schema, iš kurios susidaro dvi skirtingos populiacijos: 1) MDDC ir 2) MDM. UCSC genomo naršyklės takelis rodo RNA-Seq skaitymus iš monocitų, makrofagų ir dendritinių ląsteliųGAPLINClokusas. () RNR, išgrynintų iš branduolinių (baltų) ir citoplazminių (pilkųjų) frakcijų MDM, qPCR analizė (Ruso, išskirto iš skirtingų MDM sistemų polisomų frakcijų, G qPCR analizė (sacharozės gradientas nuo 10 iki 50 proc., SW41, 40 K aps./min.) 1,5 val.).
Naujausi tyrimai nustatė tūkstančius ilgų nekoduojančių RNR (ncRNR) žinduolių genomuose, kurios reguliuoja genų ekspresiją skirtinguose biologiniuose procesuose. Nors IncRNR buvo identifikuotos įvairiose imuninėse ląstelėse ir yra susijusios su imuniniu atsaku, daugumos biologinė funkcija ir mechanizmas lieka neištirti, ypač sergant sepsiu. Čia mes nustatome hdRNR - skrandžio adenokarcinomos nuspėjamosios ilgos tarpgeninės nekoduojančios RNR (GAPLINC) - vaidmenį, kuris anksčiau buvo apibūdintas dėl savo vaidmens sergant vėžiu, dabar atsižvelgiant į įgimtą imunitetą, makrofagus ir LPS sukeltą endotoksinį šoką. Žmonių ir pelių makrofagų transkripto analizė atskleidžia, kad GAPLINC yra konservuota IndRNR, kuri yra labai išreikšta po makrofagų diferenciacijos. Suaktyvinus uždegimą, GAPLINC greitai sumažėja. Makrofagai, kurių GAPLINC išeikvotas, pradžioje rodo sustiprintą uždegiminių genų ekspresiją, o per didelė GAPLINC ekspresija slopina šį atsaką. Atsižvelgiant į GAPLINC išeikvotas ląsteles, Gaplinc išmuštos pelės rodo padidėjusį bazinį uždegiminių genų lygį ir rodo atsparumąLPS sukeltasendotoksinis šokas. Mechaniškai išgyvenimas yra susijęs su padidėjusiu branduolinio NF-xB lygiu Gaplinc išmuštose pelėse, kurios skatina bazinę tikslinių genų ekspresiją, paprastai aktyvuojamą tik po uždegiminės stimuliacijos. Mes parodome, kad šis imuninio atsako genų aktyvavimas prieš LPS iššūkį sumažina kraujo krešulių susidarymą, o tai apsaugo Gaplinc išmuštas peles nuo daugelio organų nepakankamumo ir mirties. Kartu mūsų rezultatai nustato anksčiau nežinomą GAPLINC, kaip neigiamo uždegimo reguliatoriaus, funkciją. ir atskleisti pagrindinį šios lncRNR vaidmenį moduliuojant endotoksinį šoką.
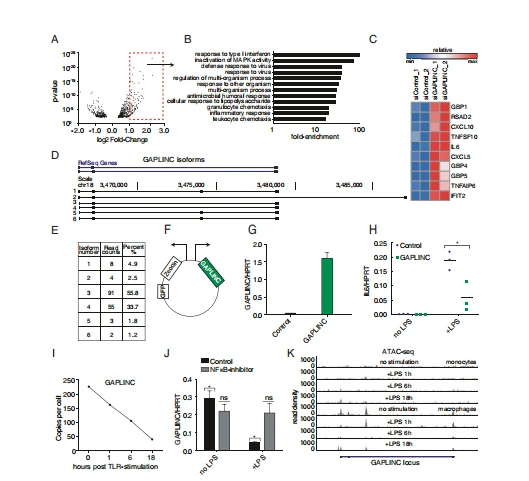

2 pav. GAPLINC yra neigiamas uždegimo reguliatorius ir priklauso nuo Nf-sB signalizacijos. Monocitai, išskirti iš žmogaus PBMC ir diferencijuoti į makrofagus, buvo transfekuoti kontroline arba GAPLINC siRNR. (A)RNR sekų analizėant GAPLINC kd arba kontrolinių siRNA MDM. RNA-Seq buvo atliktas biologiniais dublikatais. Rezultatai pavaizduoti ugnikalnio sklype. Žymiai reguliuojami genai, kurių kartos pokytis didesnis nei 2 arba lygus 2, pažymėti raudonai. (6) Žymiai reguliuojamų genų GO-Term analizė. (C) Šilumos žemėlapis rodo geriausių su imunine sistema susijusių genų ekspresiją, reguliuojamą GAPLINC kd. Duomenys iš RNA-Seq buvo atlikti biologiniais dublikatais. (D) GAPLINC izoformos MDM buvo nustatytos naudojant nanopore pagrįstą R2C2 seką. Nanopore sekos nustatymo duomenys buvo atlikti biologiniais dublikatais (neapdorotus duomenis galima rasti SRAunder Bloproject PRINA639136). (E) Lentelė, rodanti kiekvienos GAPLINC izoformos skaitymų skaičių ir procentą. (F) Dvikryptis vektorius, išreiškiantis GFP-Zetociną vienoje pusėje ir GAPLINC kitoje pusėje. (G ir H) GAPLINC ekspresijos qPCR analizė THP-1 ląstelėse, ekspresuojančiose negimdinį GAPLINC arba tuščio vektoriaus kontrolę. IL6 lygiai buvo kiekybiškai įvertinti po stimuliacijos LPS (200 nal ml) 6 valandas; duomenys buvo sujungti iš trijų nepriklausomų eksperimentų.*P<0.05. ()="" rna-seq="" analysis="" of="" mdms="" stimulated="" with="" lps(200="" ng/ml)="" for="" the="" indicated="" time="" points.="" data="" from="" rna-seq="" was="" performed="" in="" biological="" duplicates.="" galplinc="" expression="" is="" represented="" as="" copies="" per="" cell="">FPKM), GAPLINC U qPCR analizė MDM (n=3)iš anksto apdorotuose DMSO arba BAY-7082(10 μM)), po to LPS stimuliacija (200 ngmL)) 6 ht. Duomenys buvo sujungti iš trijų nepriklausomų eksperimentų. *P<0.05. (k)atacseq="" analysis="" of="" monocytes="" and="" macrophages,="" untreated="" and="" treated="" with="" lps="" (200="" ng/ml)="" for="" 1,6,="" and="" 18h.ucsc="" browser="" track="" displays="" atac-seq="" reads="" at="" the="" gaplinc="">
sepsis yra gyvybei pavojinga liga, kurią sukelia per didelė organizmo reakcija į infekciją, kuri gali greitai sukelti daugelio organų nepakankamumą ir mirtį. Imuninė sistema yra būtina apsaugant nuo infekcijų; tačiau nekontroliuojamas aktyvavimas gali turėti rimtų pasekmių šeimininkui. Ligų kontrolės ir prevencijos centrų duomenimis, vienas iš trijų pacientų, mirusių ligoninėje, serga sepsiu (1). ir vis dėlto mes vis dar nesuprantame pagrindinių molekulinių mechanizmų, lemiančių mirtį. Klinikinės sepsio gydymo galimybės apsiriboja skysčių, antibiotikų ir palaikomojo gydymo skyrimu ir iš esmės nepakito dešimtmečius. Nors ankstyva diagnozė ir greitas gydymas pagerino sepsio rezultatus (2), labai svarbu sukurti naujus gydymo būdus. Nors buvo atlikti genų ekspresijos tyrimai, siekiant ištirti galimus terapinius sepsio taikinius, šie taikiniai iš esmės nėra apibūdinti (3). Mes nustatėme ilgą nekoduojančią RNR (lncRNR), kurios vaidmuo kontroliuojant imuninį atsaką ir endotoksinį šoką, kuris suteikia galimybę kurti naujus vaistus, skirtus sepsiui.
Rezultatas


3 pav. GAPLINC yra išsaugotas pelėse ir reguliuoja atsaką į endotoksinį šoką. (4) GAPLINC yra išsaugotas sintezėje. GAPLINC yra ant Chr18 žmonėms ir Chr17 pelėms, tarp baltymus koduojančių genų Dlgap1 ir Gift. Dlgapilis neišreiškiamasmakrofagai. (B) MCA rodo Gaplinc lygių pasiskirstymą įvairiuose imuninių ląstelių tipuose (BM). (C) Gaplinc ekspresijos B ląstelėse ir BMDM qPCR analizė; šie duomenys (vidurkis ± SD) reprezentuoja tris nepriklausomus eksperimentus, (D) qPCR analizė Gaping ekspresijos BMDME, stimuliuojama LPS (200 na/mL) 6 valandas; šie duomenys (vidurkis ± SD) reprezentuoja tris nepriklausomus eksperimentus. (E) Gaplinc lokuso schema prieš ir po CRISPRCas9 tarpininkaujančios ištrynimo. Brūkšninės linijos rodo apytikslę ištrynimo sritį. Gelis reiškia genominių duomenų PGR amplifikaciją. Lyginamas WT ir Gaping KO pelių amplikonų ilgis, (F) Gaplinc ekspresijos qPCR analizė WT ir Gaplinc-KO BMDM naudojant pradmenų derinį, siekiant aptikti Exon1, Exon2 ir Gaplinc transkripto egzonus apimančias sritis; šie duomenys (vidurkis ± SD) reprezentuoja tris nepriklausomus eksperimentus. (G)RNR-Seq analizė BMDM iš WT ir Gaplinc KO pelių (n =3). Rezultatai pavaizduoti ugnikalnio sklype. Žymiai reguliuojami genai, kurių kartos pokytis didesnis nei 2 arba lygus 2, rodomi raudonai. (H) GO-Term analizė apie žymiai padidintus genus. (I ir J) WT ir Gaplinc KO pelių išgyvenamumo duomenys rodomi kaip atsakas į E. coli LPS iššūkį (5 mg/kg/pelėms) (n =6 iki 10). Statistinis skirtumų testas buvo skaičiuojamas naudojant log-rank (Mantel-Cox) testą. „...P< 0.001.="" changes="" in="" body="" temperature="" of="" wt="" and="" gapline="" ko="" mice="" were="" recorded="" at="" the="" indicated="" time="" points.="" (k)="" survival="" data="" of="" wt="" and="" gaplinc="" ko="" mice="" are="" shown="" in="" response="" to="" the="" e.="" coli="" lps="" challenge(20="" mg/kg/mice)(n="10)." the="" statistical="" test="" of="" differences="" was="" calculated="" using="" the=""><>
Kadangi lncRNR ekspresija gali reguliuoti imuninį atsaką, paveikdama imuninių ląstelių diferenciaciją ir atitinkamą jų funkciją (4-7), norėjome ištirti ncRNR vaidmenį makrofaguose. Makrofagai yra svarbios įgimtos imuninės ląstelės, kurios gali būti gautos iš monocitų ir yra labai svarbios patogenų atpažinimui naudojant į Toll panašius receptorius (TLR). TLR inicijuoja sudėtingus signalizacijos kelius, kurie suaktyvina pagrindinius transkripcijos faktorius, tokius kaip NF-kB, veda prie šimtų imuninio atsako genų transkripcijos (8).
Norėdami nustatyti IncRNR, dalyvaujančias makrofagų diferenciacijoje ir funkcijoje, atlikome RNR sekos nustatymą (RNR-Seq) tiek pirminiuose žmogaus monocitų kilmės makrofaguose (MDM), tiek monocitinėje ląstelių linijoje THP-1s (lA pav. ir SI priedas. S1 pav.). Mes nustatėme skrandžio adenokarcinomos prognozuojančią ilgą tarpgeninę nekoduojančią RNR (GAPLINC) kaip labiausiai reguliuojamą IncRNR monocitų ir makrofagų diferenciacijos metu (1B pav.). GAPLINC lygiai buvo aptinkami 1 dieną ir padidėjo iki ~ 300 kopijų vienoje ląstelėje (1C pav.). Naudodami RNR profiliavimo technologiją (nCounter, Nanostring), patvirtinome GAPLINC kaip vieną iš 10 geriausių mRNR, išreikštų diferencijuotuose pirminiuose MDM ir THP{10}} (1D pav.). Mes taip pat patvirtinome, kad GAPLINC yra labai išreikštas MDM, bet nėra išreikštas glaudžiai susijusiose ląstelių tipo monocitų kilmės dendritinėse ląstelėse (MDDC) (1E pav.), o tai rodo, kad GAPLINC yra specifinis ląstelių tipui. Atlikdami ląstelių frakcionavimo eksperimentą ir matuodami GAPLINC lygius makrofagų citoplazminiuose ir branduoliniuose skyriuose naudodami qPCR, nustatėme, kad GAPLINC daugiausia yra lokalizuotas citozolyje, lyginant su CD14, citoplazmine mRNR ir NEAT1, branduoline IncRNR (1 pav.). 1F). Tai atitinka vėžio ląstelių radinius, kuriuose GAPLINC daugiausia lokalizuotas citoplazmoje (9). Siekdami užtikrinti, kad GAPLINC nekoduotų, atlikome polisomų profiliavimą – metodą, naudojamą analizuoti, ar genas aktyviai paverčiamas baltymu. Priešingai nei CD14, nei NEATI, nei GAPLINC nebuvo rasta didelio polisomų frakcijoje, o tai rodo, kad GAPLINC nėra išverstas (1G pav.),


4 pav. „Gaplnc KO“ padidina IRG reguliavimą ir rodo padidėjusį p65 lygį nuogoje būsenoje. (A) Citokinų kiekis WT ir Gaplinc KO pelių serume esant bazal.n=4 iki 7,*P<0.05.(b and="" c)rna-seg="" analysis="" in="" bmdms="" from="" wtand="" gaplinx="" ko="" mice="" stimulated="" with="" lps="" (200naiml)for6h="" (n="3)." the23aenes="" up-regulated="" in="" gap/inc="" ko-only="" condition="" are="" compared="" to="" wt="" and="" gapfinc-ko="" bmdms="" stimulated="" with="" lps.="" the="" resulting="" fold="" change="" upon="" lps="" stimulation="" is="" shown="" for="" wt="" and="" gapinc-ko="" bmdms.genes="" are="" ranked="" according="" to="" their="" fold="" change="" in="" wt.="" (d)="" coagulation="" parameters="" assessed="" for="" wt="" and="" gapinc="" ko="" mice="" challenged="" ip.with="" e.="" coils(5mg/kg/mice)(n="4" to="" 5).plasma="" was="" collected="" 18h="" post-lpsiniection.="" aptt="" was="" measured.="" (e)genes="" upregulated="" non="" sirna="" kd="" of="" human="" gaplnc="" in="" mdms="" are="" compared="" to="" genes="" up-regulated="" upon="" crsprcas9="" knockout="" of="" mouse="" gaplincin="" bmdms="" (fold="" change="" ≥1.5).="" up-regulated="" genes="" overlapping="" in="" both="" humans="" and="" mice="" are="" shown="" in="" the="" middle.="" (f)="" western="" blot="" of="" kb-gin="" wt="" and="" gaplinc-ko="" bmdms="" at="" the="" indicated="" time="" points="" following="" stimulation="" with="" lps="" (200="" ngml);="" these="" data="" are="" representative="" of="" three="" independent="" experiments,(g)="" western="" blot="" of="" p65="" in="" wt="" and="" gaplinc-ko="" bmdms="" (n="3)" at=""><0.01. (h="" western="" blot="" of="" p65="" in="" the="" nuclear="" fraction="" of="" wt="" and="" gaplinc-ko="" bmdms="" (n="">
Toliau ištyrėme GAPLINC nutildymo poveikį diferencijuojamiems makrofagams. Kadangi diferenciacijos metu GAPLINC lygis padidėjo, iškėlėme hipotezę, kad GAPLINC numušimas (KD) turės įtakos genams, dalyvaujantiems diferenciacijoje. Naudojant sujungtą mažą trukdančią RNR (siRNR), mes pasiekėme ~ 55–65 proc. kd GAPLINC pirminiuose MDM (SIpriedas, S2 pav.). Atlikome RNA-Seq ir nustatėme keletą genų, kurie buvo sutrikę GAPLINC kd (24 pav.). Patvirtinome geriausius hitus naudodami „Nanostring“ (SI priedas, S3 pav.). Genų ontologijos (GO) praturtinimo analizė parodė, kad imuninio atsako genai buvo žymiai per daug atstovaujami genuose, reguliuojamuose GAPLINC kd, o ne genuose, dalyvaujančiuose makrofagų diferenciacijoje, priešingai nei mūsų pradinė hipotezė. (2B pav.). Pažymėtina, kad skirtingai išreikšti genai GAPLINC-KD ląstelėse apima priešuždegiminius citokinus ir chemokinus (IL6, CXCL10 ir TNFSF10), IFN stimuliuojamus genus (ISG) (IFIT2 ir RSAD2) ir guanilatą surišančius baltymus (GBP) (GBP3 ir GBP5). (2C pav. ir SI priedas. S4 pav.). Norėdami patikrinti, ar GAPLINC kd nepaveikė makrofagų diferenciacijos. CD11B.CD16 ir CD14 lygiai buvo išmatuoti kontroliniuose ir signalizuotuose makrofaguose ir buvo panašūs (SI priedas. S5 pav.). Tada naudojome papildomą kd metodąCRISPRslopinimas (CRISPRi), nukreiptas į transkripcijos pradžios vietą, naudojant GAPLIN.Naudojant tris skirtingas vadovaujančias RNR (gRNR) THP{0}} ląstelėse, stimuliuojamose forbolio 12-miristato 13-acetatu (PMA). Mes pasiekėme daugiau nei 80 procentų kd GAPLINC ir vėl pastebėjome padidėjusią priešuždegiminio citokino IL6 ekspresiją, kai GAPLINC numuštas pradiniame taške (SI priedas. S6 A ir B pav.). Įdomu tai, kad po lipopolisacharido (LPS) aktyvacijos IL6 lygiai buvo panašūs kontrolinėse ir GAPLINC kd THP-1 ląstelėse (SIPriedas, S6C pav.). Kadangi pradinis lygis skiriasi, pašalinus GAPLINC, bendra IL6 indukcija sumažėja. (S7 priedas, S6D pav.).
Kadangi GAPLINC kd padidino imuninio atsako genų reguliavimą, sukūrėme THP-1 ląstelių liniją, per daug ekspresuojančią GAPLINC, kad nustatytų, ar ji tarpininkauja priešingai. Naudojant ilgai skaitomus sekos duomenis. mes nustatėme dominuojančias GAPLINC izoformas, išreikštas MDM (2D pav.). Labiausiai paplitusi izoforma, atitinkanti etaloninės sekos (RefSeq) geno anotaciją, buvo įtraukta į mūsų konstrukciją (2E pav.). Mes panaudojome lentivirusinį vektorių, turintį dvikryptį promotorių, kad lygiagrečiai valdytų žalią fluorescencinį baltymą (GFP) / Zeociną ir GAPLINC (2 pav. F). Naudodami qPCR patvirtinome, kad GAPLINC buvo stabiliai išreikštas THP-1, palyginti su kontroline medžiaga (2G pav.). Per didelė GAPLINC ekspresija sumažino IL6 RNR lygiu, palyginti su kontrole po stimuliacijos LPS, gramneigiamų bakterijų komponentu (2H pav.). Šie stebėjimai rodo, kad GAPLINC veikia kaip neigiamas uždegiminio atsako reguliatorius.
Toliau mes ištyrėme GAPLINC lygį pirminiuose MDM, reaguojant į uždegimą. Po LPS stimuliacijos nustatėme, kad GAPLINC greitai sumažėjo (2I pav.). Be to, naudodami qPCR parodome, kad GAPLINC taip pat yra sumažintas po aktyvavimo su įvairiaisTLRligandai (SI priedas, S7A pav.). Patvirtinta teigiamos kontrolės uždegiminių genų TNF-a, IL6 ir CCL5 indukcija (SI priedas, S7B pav.). Šie duomenys rodo, kad GAPLINC ekspresija turi būti sumažinta po stimuliacijos, kad įvyktų optimali uždegiminio geno indukcija. Norint įvertinti NF-kB vaidmenį kontroliuojant GAPLINC ekspresiją, MDM buvo iš anksto apdoroti dimetilsulfoksidu (DMSO) arba BAY11-7082, NF-B inhibitoriumi,
po to 6 valandas buvo stimuliuojama LPS.BAY11-7082-gydytų MDM.GAPLINC reguliavimas buvo sutrikęs, palyginti su kontroline (2 pav./). o tai rodo, kad GAPLINC reguliavimas priklauso nuo NF-KB signalizacijos. Patvirtinta teigiamos kontrolės uždegiminių genų TNF- ir IL6 indukcija stimuliuojant LPS (SIPriedas, Fig., S7C). Kad suprastume, kaip reguliuojamas GAPLINC, panaudojome transpozazės pasiekiamo chromatino tyrimą, naudojant sekvenavimą (ATAC-seq) MDM. įvertinti GAPLINC lokuso chromatino prieinamumą. Mes nustatėme, kad GAPLINC aktyviai transkribuojamas ramybės būsenos makrofaguose, bet po LPS stimuliacijos sandariai uždaromas (2K pav.), o tai rodo, kad GAPLINC yra reguliuojamas transkripcijos lygiu.

Ištirti GAPLINC išsaugojimą tarp žmonių ir pelių. siekėme identifikuoti sinteninius lokusus, kuriuose genai yra išsilaikę tarp tų pačių dviejų baltymus koduojančių genų. po to atliekamas funkcinės išsaugojimo įvertinimas. Čia parodome, kad Gaplinc padėtis yra konservuota, aptinkant transkriptą tarp genų Dlgap1 ir TgifI (3A pav.). Norėdami patvirtinti ląstelių tipo specifiškumą, panaudojome pelės ląstelių atlasą (MCA)
(10) įvertinti transkripto lygius visose imuninėse ląstelėse kaulų čiulpuose (BM) ir nustatyta, kad jis didžiausias išreikštas makrofaguose, o neutrofilų pirmtakuose – mažesnis ekspresijos lygis (3B pav.). Toliau, norėdami nustatyti, ar ekspresijos modeliai buvo išsaugoti makrofagų diferenciacijos metu tiek žmonėms, tiek pelėms, atlikome RNR-Seq, lygindami KM ląsteles su kaulų čiulpų makrofagais (BMDM), užbaigėme de novo transkripto surinkimą ir nustatėme, kad pelės Gaplinc lygis padidėjo po diferenciacijos. (SI priedas, S8A pav.). Mes tai patvirtinome qPCR, lygindami Gaplinc lygius BM ląstelėse su BMDM (3C pav.). Palyginti su žmogaus GAPLINC. pelės Gaplinc greitai sumažinamas LPS stimuliuojamuose BMDM (3D pav.). Kaip kontrolę patvirtinome uždegiminių genų The-a ir I6 indukciją (SI priedas. S8B pav.). Pelės Gaplinc taip pat greitai sumažinamas po aktyvavimo su įvairiais TLR ligandais. Taip pat buvo patvirtinta teigiamų kontrolinių genų ll6 ir Ccl5 indukcija (SI priedas, S8C pav.).
Naudojant CRISPR, mes sukūrėme Gaplinc knockout (KO) pelę, kurioje buvo pašalintas I egzonas ir didžioji dalis pirmojo introno (3E pav.). Chaplin KO pelės veisėsi normaliai ir neturėjo jokių akivaizdžių vystymosi defektų. Gaplino ištrynimas buvo patvirtintas PGR amplifikacijos būdu laukinio tipo (WT) ir Gaplinc KO pelių genominės DNR amplifikacijos dydžiu ~1300 bp WT ir ~500 bp Gaplinc KO pelėms (3E pav.). Visa genotipų nustatymo strategija patvirtinti WT ir Gaplinc KO yra paryškintas SI priede, S9 pav. Taip pat patvirtinome Gaplinc trūkumą BMDM naudojant qPCR (3F pav.). Norėdami įvertinti, ar Gaplinc trūkumas paveikė diferenciaciją, nudažėme WT ir Gaplinc-KO BMDM CD11B ir F4/80; dažymosi modeliai buvo panašūs, o tai rodo normalią makrofagų diferenciaciją (SI priedas, S104 pav.). Norėdami įvertinti, ar Gaplinc KO sutrikdė makrofagų funkciją, palyginome fagocitozės aktyvumą WT ir Gaplinc-KO BMDM ir neradome jokių skirtumų (SI priedas, S10B pav.).
Norėdami įvertinti visuotinį Gaplinc trūkumo poveikį makrofagams, atlikome RNA-Seq WT ir Gaplinc-KO BMDM; abu buvo negydyti ir LPS stimuliuojami 6 val. Gaplinc-KO BMDM 23 genų (parodyta raudonai. 3G pav.) ekspresija buvo žymiai padidinta pradiniame lygyje. Šie genai apima priešuždegiminius citokinus ir chemokinus (Il6.l1-a. I1-8 ir Cxd10), ISG (Ifitlbl1), GBP šeimos narius (Gbp5 ir Gbp0) ir ląstelių paviršiaus žymenys, specifiniai aktyvuotiems makrofagams (Cd69). GO analizė patvirtino, kad pradiniame Gaplinc-KO BMDM genai, dalyvaujantys imuniniame atsake, yra per daug (3H pav.). Šie genai paprastai yra reguliuojami po LPS stimuliacijos (SI priedas. S11 pav.). Panašiai kaip duomenys, gauti iš mūsų tyrimų su žmonėmis, šie duomenys rodo, kadGAPLINCyra funkciškai išsaugotas visose rūšyse, kad iš esmės kontroliuotų uždegiminio atsako genų (IRG) ekspresiją. Tarp WT ir Gaplinc-KO BMDM (duomenų rinkinys S1) nebuvo didelių skirtumų tarp genų, kurie buvo sureguliuoti po LPS stimuliacijos.
Daugybė tyrimų parodė, kad IncRNR gali reguliuoti gretimų genų transkripciją (11). Taigi mes ištyrėme galimus cis-reguliacinius Gaplinc vaidmenis, nes jo kaimyninis genas Tgif1 anksčiau buvo susijęs su makrofagų aktyvacijos moduliavimu (12). Naudodamiesi mūsų RNA-Seq duomenimis, patvirtinome, kad GaplincKO BMDM Tgifl ekspresija, palyginti su T ląstelėmis, nebuvo paveikta (SIAppendir. S124 pav.). Be to, qPCR patvirtinome, kad Tgifl nepakito Gaplinc-KO BMDM (SI priedas, S12B pav.). Toliau ištyrėme galimybę, kad Gaplinc lokuso sutrikimas gali pašalinti svarbų reguliavimo elementą, pvz., Stiprintuvą. Mes panaudojome ATAC-seq duomenis iš WT BMDM, kad įvertintume transkripciškai aktyvius regionus Gaplinc lokuse (13). Mes nenustatėme signalų Gaplinc delecijos srityje, tik tuos, kurie atitinka Gaplinc promotorių (SI priedas. S13 pav.). Visi šie duomenys rodo, kad IRG reguliavimas dėl Gaplinc trūkumo nėra susijęs su poveikiu gretimiems genams ar reguliavimo elemento pašalinimui.
Kadangi Gaplinc KO BMDM padidina IRG ekspresijos reguliavimą bazinėmis sąlygomis, mes norėjome mesti iššūkį Gaplinc KO gyvūnams in vivo stebėti šeimininko atsako skirtumus. Mes panaudojome „endotoksinio šoko“ modelį. kurioje Escherichia coli LPS buvo įšvirkščiama į pilvaplėvės ertmę (ip) WT ir Gaplinc KO pelėms, siekiant išmatuoti išgyvenamumo skirtumus. Vartojant 5 mg/kg/pelei dozę. WT pelių išgyvenamumas buvo 0 proc. po 2 d. (30 pav. Tačiau 100 proc. Gaplinc KO pelių išgyveno, o tai reiškia, kad Gaplinc KO pelės yra atsparios LPS sukeltam endotoksiniam šokui (31 pav.). , pastebimi reikšmingi temperatūrų skirtumai tarp pelių, kurioms trūksta WT ir Gaplinco (3 pav.). Netgi naudojant daug didesnę LPS dozę – 20 mg/kg, pelėms, kurioms trūksta Gqplinc, išgyvenama reikšmingai (3K pav.). , šie duomenys rodo, kad Gaplinc vaidina svarbų vaidmenį reguliuojant imuninį atsaką in vivo.
Iš mūsų tyrimų su žmonėmis žinome, kad GAPLINC gali reguliuoti imuninius genus iš pradžių. Nors citokinų ekspresija po uždegiminio aktyvinimo nesiskiria, skiriasi atsako dydis, nes skiriasi pradinis lygis, todėl norėdami geriau suprasti šiuos išgyvenamumo skirtumus in vivo, įvertinome citokinų ekspresijos pokyčius pradiniame lygyje. Mes panaudojome multipleksuotą citokinų masyvą, kad vienu metu išmatuotų biomarkerius, susijusius su imuniniu atsaku, sepsiu ir vėžiu. Iš pradžių pagrindiniai imuniniai genai, įskaitant MDC. MIP-1a.IL-13. IL-5. ir M-CSF buvo žymiai padidėjęs Gqplinc KO pelių serume, palyginti su WT (44 pav.). Šie citokinai yra susiję su ląstelių pritraukimu: tačiau naudojant srauto citometriją, patvirtinome, kad neutrofilų, T ląstelių, B ląstelių, eozinofilų, monocitų ir makrofagų procentas buvo palyginamas tarp WT ir Gaplinc KOmice pradiniame lygyje (SI priedas, S14 pav.). . Įdomu tai, kad šie procentai taip pat buvo palyginami su iššūkiais po LPS 6 ir 18 valandų laiko momentais (SI priedas, S15 ir S16 pav.). Be to, WT ir Gaplinc KO pelių serumas, tirtas dėl klinikinių sepsio požymių, įskaitant laktatą ir C reaktyvųjį baltymą (CRP) (S7 priedas, S17 pav.), neparodė jokių skirtumų.
Kadangi anksčiau buvo apibūdinta, kad padidėjęs MDC arba IL{0}}(44 pav.) kiekis, moduliuodamas priešuždegiminius citokinus, atlieka apsauginį vaidmenį nuo endotoksinio šoko (14, 15), toliau ištyrėme priešuždegiminių citokinų lygių skirtumus. , įskaitant l6, Il1-, l1- ir Cxcl10, po uždegiminio aktyvavimo. Nors WT ir Gaplinc KO lygiai yra vienodi tiek transkripto (4B pav.), tiek baltymų lygiu (SI priedas, S18A-C pav.), pokyčio mastas yra daug mažesnis (4C pav.), o tai rodo, kad šis sumažėjęs klostymas pokyčiai gali turėti įtakos užkertant kelią Gaplinc KO pelių jautrumui LPS. sukeltas endotoksinis šokas.
Kartu su siaučiančia citokinų gamyba. Kitas klinikinis endotoksinio šoko, galinčio sukelti mirtį, aspektas yra kraujo krešulių susidarymas mažesnėse kraujagyslėse, dėl kurių atsiranda daugelio organų nepakankamumas (16.17). Norėdami tai išspręsti, išanalizavome LPS ip. gydytų pelių serumą, kad įvertintume krešėjimo skirtumus. Naudodami aktyvuotą dalinį tromboplastino laiko (a) tyrimą, kuris matuoja laiką iki krešulio susidarymo, nustatėme, kad WT pelėms LPS iššaukimo laikas žymiai pailgėja, palyginti su Gaplinc KO pelėmis (4D pav.). Ilgesnis aPTT laikas rodo, kad WT pelėms jau buvo atliktas krešėjimas ir išeikvoti pagrindiniai krešėjimo faktoriai, todėl tyrimo, krešėjimo inicijavimo ir matavimo metu krešulių susidarymo laikas pailgėja. Duomenys rodo, kad išgyvenamumo skirtumai po LPS poveikio atsirado dėl to, kad WT pelėms padidėja krešėjimas, dėl kurio gali atsirasti organų nepakankamumas ir mirtis.
Toliau bandėme mechaniškai suprasti, kaip Gaplinc tarpininkauja šiam efektui. Pirma, mes patvirtinome jo lokalizaciją ir išanalizavome Gaplinc lygius tiek BMDM citoplazminiuose, tiek branduoliniuose skyriuose qPCR. Panašus į žmogaus GAPLINC. pelės Gaplinc daugiausia buvo citoplazminis (ST priedas, S19 pav.). Tada atlikome modifikuotą visapusį RNR surišančių baltymų (ChIRP) identifikavimą, kartu su masės spektrometrija ir mažos RNR sekos nustatymu, nes anksčiau buvo įrodyta, kad GAPLINC sąveikauja su mikro RNR (18). Mes nepastebėjome sąveikos su anksčiau nustatytais tikslais (SIPriedas, S20 pav.).
Kadangi negalėjome nustatyti tiesioginio surišimo partnerio, mes sutelkėme dėmesį į išsaugotą funkciją tarp žmonių ir pelių, ypač konservuotus genus, paveiktus mūsų žmogaus GAPLINC kd ir pelės Gaplinc KO tyrimuose, kurių dauguma yra NF-kB reguliatoriai (4E pav. ). Gausiausia LPS aktyvuota NF-KB forma yra p65:p50 heterodimeras, o septyni iš devynių konservuotų genų yra tiesioginiai p65 taikiniai (19). Naudojome natūralią RNR imunoprecipitaciją (RIP) ir parodėme, kad nėra tiesioginės sąveikos tarp Gaplinc ir p65 (S7 priedas, S21 pav.). Klasikiniame NF-kB signalizacijos kelyje p6:p50 subvienetai yra citozolyje ir yra surišti. į slopinančią I-kB- ramybės ląstelėse. Po aktyvacijos I-KB- suyra, todėl p65:p50 gali persikelti į branduolį ir suaktyvinti tikslinius genus (20). WT ir Gaplinc-KO BMDM išmatavome I-kB-skilimą naudodami Western blot ir neradome jokių skirtumų (4F pav.). Toliau palyginome bendrą p65 lygį BMDM. Mūsų RNA-Seg duomenyse, p65 (RelA) transkripto lygiai tiek bazinėmis, tiek LPS stimuliuotomis sąlygomis WT ir Gaplinc-KO BMDM yra palyginami (SI priedas, S22 pav.). Tačiau, kai palyginome bendrą p65 baltymų kiekį Western blot metodu, mes nustatėme, kad Gaplinc-KO ląstelėse p65 lygis žymiai padidėjo, palyginti su WT (4G pav.). Tai rodo, kad Gaplinc reguliuoja bendrą p65 lygį transliacijos lygiu. Be to, mes įvertinome p65 lygį citoplazmos ir branduolio skyriuose ir nustatėme, kad branduolinio p65 yra gausiau Gaplinco trūkumo ląstelėse, palyginti su WT (4H pav.). Kartu šie duomenys rodo, kad GAPLINC atlieka mechaninį vaidmenį aktyvuojant svarbias IRG.
Diskusija
Čia mes nustatėme GAPLINC kaip konservuotą citozoliškai išreikštą IncRNR žmonėms ir pelėms, kuri kontroliuoja uždegiminių genų ekspresiją reguliuojant NF-xB. Palyginti su citozolinėmis IncRNR, kurios daro įtaką transliacijos efektyvumui, moduliuodamos baltymų ekspresiją arba ribosomų sąranką (21-23), mes nustatėme, kad Gapline citozoliškai prisideda prie p65 transliacijos gebėjimo; tačiau tiesioginės ar netiesioginės sąveikos mechanizmas dar turi būti nustatytas. Mūsų išvados suteikia įžvalgų apie tai, kaip funkciškai konservuota IncRNR reguliuoja imuninį atsaką ir suteikia galimybę tirti endotoksinio šoko gydymo priemones.


