
Feniletanolio glikozidai iš Cistanche Tubulosa slopina kepenų žvaigždžių ląstelių aktyvaciją ir blokuoja signalizacijos takų laidumą TGF{0}}/smad, kaip galimi vaistai nuo kepenų fibrozės
Mar 05, 2022
Kontaktai: Audrey Hu Whatsapp/hp: 0086 13880143964 El. paštas:audrey.hu@wecistanche.com
Shu-Ping You, Long Ma, Jun Zhao, Shi-Lei Zhang ir Tao Liu
Santrauka: Cistanche tubulosayra tradicinis kinų augalinis vaistas, plačiai naudojamas imunitetui reguliuoti irfeniletanoidiniai glikozidai(CPhG) yra vienas iš pagrindinių komponentų, atsakingų už šią veiklą. Ankstesni tyrimai parodė prevencinį ir gydomąjį CPhG poveikį galvijų serumo albumino (BSA) sukeltai žiurkių kepenų fibrozei. Tyrimo tikslas – įvertinti CPhG ir monomerų antihepatinę fibrozę poveikį.echinakozidasirakteozidoslopindamas kepenų žvaigždžių ląstelių (HSC) aktyvaciją, blokuodamas signalizacijos takų laidumą transformuojant augimo faktorių-p1 (TGF-p1)/smad, ir nustatyti, kad jie yra in vitro hepatoprotekcinis aktyvumas. Akivaizdu, kad HSC proliferacija buvo slopinama po gydymo CPhG (100,50 ^g/ml)/echinakozidu (500 250,125 ^g/mL)/akteozidu (6, 3 ^g/mL), kai IC50 vertės buvo 119,125 520,99 ir g/6,999. ml, atitinkamai MTT tyrime. Skirtingos koncentracijos CPhG/echinakozidas/akteozidopagal laktatdehidrogenazės (LDH) matavimus neturėjo įtakos ląsteliniam toksiškumui HSC. Skirtingos koncentracijos CPhG/echinakozidas/akteozidopadidino smad7 mRNR lygį ir baltymų ekspresiją bei sumažino smad2, smad3 mRNR lygį ir smad2, phospho-smad2 (p-smad2), smad3, phospho-smad3 (p-smad3) baltymų ekspresiją HSC. Apibendrinant, šie rezultatai rodo, kad CPhGs /echinakozidas/akteozidogali blokuoti signalizacijos takų laidumą TGF-p1/smad ir slopinti HSC aktyvavimą, o tai rodo, kadC. tubulosatodėl gali būti galimas augalinis vaistas kepenų fibrozei gydyti.
Raktiniai žodžiai: Cistanche tubulosa; feniletanolio glikozidai išCistanche(CPHG);echinakozidas; akteozido; kepenų žvaigždžių ląstelės (HSC); TGF-p1/smad

1. Įvadas
tampa proliferacinės ir fibrogeninės, vėliau kaupiasi ECM ir galiausiai diferencijuojasi į fibrogenines miofibroblastų tipo ląsteles. Transformuojantis augimo faktorius-.1 (TGF-p 1) laikomas pagrindiniu profibrogeniniu tarpininku. Signalizacijos kelias, susijęs su TGF-&1, yra svarbus kepenų fibrozės mechanizmas ir daugiausia apima nuo Smad priklausomą ir nuo SMA nepriklausomą signalizaciją, o nuo SMA priklausomas signalų perdavimo kelias, kaip manoma, yra pagrindinis TGF-p1 signalizacijos kanalas. . Todėl TGF-p1 / Smad signalizacijos kelio blokada gali slopinti kolageno gamybą ir galiausiai sušvelninti kepenų fibrozę, todėl pastaraisiais metais šis kelias tapo svarbiu taikiniu tiriant vaistus nuo kepenų fibrozės.
Nepaisant didelio pasaulyje sergamumo kepenų fibroze, nėra visuotinai pripažinto antifibrogeninio gydymo [2–4]. Tradiciniai kinų vaistažolių vaistai (TCHM) yra labai svarbūs gydant kepenų sutrikimus, nes kai kurie gali būti naudojami terapiniai vaistai kepenų fibrozės gydymui ir profilaktikai. Šiuo metu daugelis tyrimų yra sutelkti į galimus antifibrogeninius vaistus, kurie tūkstančius metų buvo naudojami kaip TCHM [5].
Cistanche tubulosa W (šeimos Orobanchaceae) fa parazitinis augalas, plačiai auginamas pietiniame Sindziango regione Kinijoje [6]. Žmonės jį naudoja inkstams pagyvinti, kraujui maitinti, viduriams atpalaiduoti ir senėjimui atitolinti be šalutinio poveikio. Oficialiai įtrauktas į Kinijos farmakopėją [7]. C. tubulosa sudėtyje yra įvairių aktyvių komponentų, įskaitant feniletanoidinius glikozidus (CPhG), iridoidus ir polisacharidus. Tarp daugelio aktyvių C. tubulous komponentų CPhG, pasižymintys tam tikru biologiniu aktyvumu (antioksidantas, nuovargis, atsparumas radiacijai ir kt.), yra pagrindiniai šio augalo būdingi komponentai. Pastaraisiais metais buvo pranešta, kad CPhGis turi per daug Hento hepatoprotekcinį poveikį ir gali sunaikinti medžių radikalus, apsaugoti kepenų membranas ir turėti imunoreguliacinį poveikį, slopinti apoptozę, slopinti hepatito B paviršiaus antigeno (HBs Ag) ir hepatito B ekspresiją. e antigeno (HBeAg) ir hepatito B viruso (HBV) DNR replikacijos aktyvumas ir kt. HBV DNR lygis yra patikimiausias indeksas, tiesiogiai atspindintis viruso replikacijos aktyvumą, kuris yra pagrindinis veiksnys nustatant natūralią lėtinių HBV infekcijų istoriją. stebėti oP antivirusinio gydymo poveikį ir įvertinti ūminių ir lėtinių HBV infekcijų prognozę. Serologiniai HBV aptikimo indeksai daugiausia apima HBsAg, HBeAg ir kt. [8–11]. Tačiau literatūroje yra nedaug pranešimų apie CPhG poveikį prieš kepenų fibrozę. Ankstesni tyrimai parodė prevencinį ir gydomąjį CPhG poveikį galvijų serumo albumino (BSA) sukeltai žiurkių kepenų fibrozei, tačiau CPhG ir jo pagrindinių monomerų (echinakozido ir akteozido, 1 pav.) antifibrogeninis aktyvumas niekada nebuvo įvertintas in vitro.

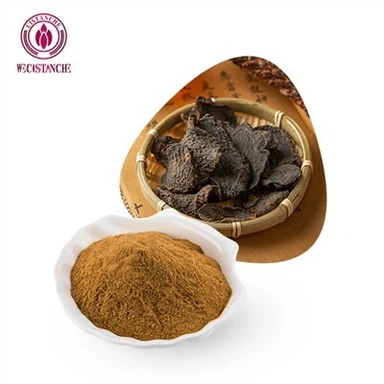
ekologiškas Cistanche tubulosa
2. Rezultatai
2.1. CPhG kiekybinis nustatymas
CPhGs vidujeC. tubulosayra dviejų feniletilo alkoholio glikozidų: echinakozido ir akteo pusės, o jų kiekis CPhG buvo aptiktas HPLC analize (1 pav.) – 42,71 proc. 土 0,42 proc. ir 14,27 proc. 土 0.18 atitinkamai procentais.
2.2. CPhG, echinakozido ir akteozido slopinimas HSC-T6
CPhG, echinakozidas ir akteozidas (62.5-500 卩g/mL) slopino HSC ląstelių gyvybingumą priklausomai nuo koncentracijos. CPhG ir akteozidas parodė puikų slopinamąjį poveikį HSC ląstelėms, 50 procentų slopinantis ląstelių augimo aktyvumą (IC50) buvo atitinkamai 119,125 µ/mL ir 6,999 µ/mL. Echinakozidas pasižymėjo vidutiniu slopinamuoju aktyvumu (IC50 520,345 昭/mL; 1 lentelė ir 2 pav.).

2.3. CPhG, Echin acoside ir Acteorida toksiškumas ląstelėms ant HSC
Laktato dehidrogenazė (LDH), stabilus citoplazminis fermentas, esantis visose ląstelėse, greitai išsiskiria į ląstelių kultūros supernatantą, kai pažeidžiama plazmos membrana. Fermentų aktyvumas kultūros supernatante koreliuoja su lizuotų ląstelių dalimi [12]. Kaip parodyta 2 lentelėje, gydant skirtingomis: C PhG, echinakozido ir akteozido koncentracijomis, nors LDH aktyvumas šiek tiek padidėjo, palyginti su ląstelių koirtrolio grupe, skirtumas nebuvo statistiškai reikšmingas (p > 0.05). ), nurodant, kad dauguma ląstelių membranų išlaiko savo vientisumą, o CPhG, echinakozido ir akteozido slopinimas HSC nėra dėl nespecifinio toksiškumo ląstelėms.

2.4. CPhG, echinakozido ir akteosdo poveikis HSC proliferacijai, sukeltam TGF-^i
HSC dauginimąsi, aktyvavimą ir diferenciaciją reguliuoja įvairūs veiksniai. Tarp įvairių kepenų fibrozės veiksnių TGF{0}} laikomas svarbiausiu, nes jis gali aktyvuoti HSC, skatinti miofibroblastų diferenciaciją, padidinti ECM sintezę ir slopinti ECM skaidymą bei išskirti chemokinus ir citokinų, susijusių su kepenų fibroze [13]. Šiame tyrime, išskyrus kontrolinę grupę, stacionarūs HSC buvo stimuliuojami TGF-P1 in vitro, siekiant imituoti ankstyvos kepenų fibrozės formavimąsi ir ištirti CPhG, echinakozido ir akteozido poveikį TGF-p1- sukelta HSC proliferacija. Kaip parodyta 3 lentelėje, palyginti su kontroline grupe, TGF-61 grupė reikšmingai skatino HSC dauginimąsi (p < 0.01).="" palyginti="" su="" tgf-p1="" grupe,="" tgf-p1="" ir="" cphg="" (tc)="" (50,100="" 卩g/ml,="" p="">< 0,05),="" tgf{{18}="" }="" plius="" echinakozidas="" (te)="" (125,="" 250,="" 500="" 卩g/ml,="" p="">< 0,05),="" tgf-p1="" ir="" akteozidas="" (ta)="" (3,0,="" 6,0="" 卩g/ml,="" p="">< 0,05)="" visi="" labai="" slopina="" proliferaciją.="" tgf-|3="" 1="" skirtingais="" laipsniais="" sukeltos="">

2.5. Smad2) smad3 ir smad7 mRNR ekspresijos po CPhG, ochmakozido ir akteazido intervencijos į HSC
Smad3 ir smad2 yra pagrindiniai TTGF-p signalizacijos kelio efektoriai [14,15], o smad7 yra smad signalizacijos inhibitorius. Teoriškai padidėjusi smad7 ekspresija arba sumažėjusi smad2/smad3 ekspresija gali blokuoti signalizacijos takų laidumą TGF-p 1/ smad. Kaip parodyta 3 paveiksle, realiojo laiko kiekybinė PGR analizė parodė, kad smad2 ir smad3 mRNR ekspresija parodė žemesnį lygį, o smad7 kontrolinėje grupėje nurodė aukštesnį lygį, palyginti su TGF-|31 grupe. TC (25, 50, 75,100 |dg/mL) grupėje smad2 mRNR lygis (p < 0).{37="" }}5)="" ir="" smad3="" (p="">< 0,01)="" reikšmingai="" sumažėjo,="" lyginant="" su="" tgf-pf="" grupe="" ir="" netgi="" buvo="" panašus="" į="" kontrolinę="" grupę;="" tuo="" tarpu="" smad7="" mrnr="" lygis="" buvo="" reikšmingai="" padidėjęs="" tc="" (50,="" 75="" 100="" 卩g/ml)="" grupėje="" (atitinkamai="" p="">< 0,05,="" p="">< 0,05,="" p="">< 0,01).="" tačiau;="" smad7="" ekspresija="" rodė="" didėjančią="" tendenciją="" tc="" 25="" 卩g/ml="" grupėje,="" palyginti="" su="" tgf-p1="" grupe="" (3="">

Tuo tarpu, lyginant su TGF-p1 grupe, smad2 ir smad3 mRNR ekspresija TE buvo žymiai sumažėjusi (62,5, 125, 250, 500 卩g /mL) grupėje (p < 0.01),="" o="" smad7="" mrnr="" ekspresija="" reikšmingai="" padidėjo="" te="" (125,="" 250="" 500="" 昭/ml)="" grupėje="" (p="">< 0,01)="" (4="" pav.)="" .="" panašiai="" ta="" (0,75,="" 1,5,="" 3,0,="" 6,0="" ^g/ml)="" grupė="" taip="" pat="" parodė="" tą="" pačią="" tendenciją="" (5="">

2.6. CPhG, echinakozido ir ac)eozidų įtaka T GF-^i/smad signalizacijos keliui HSC
TGF-p 1/smad signalizacijos kelias priklauso nuo smad2, smad3, phospho-smad2 (p-smad2), phospho-smad3 (p-smad3) ir smad7, kur p-smad2, p-smad3 yra aktyvuotos smad2 ir smad2 formos. smad3. Šiame tyrime buvo analizuojami omad2, smad3, p-smad2, p-smsd3 ir smad7 baltymų kiekiai. Western blot analizė aptiko smad2, smad3, p-smad2, p-smad3 lygių padidėjimą TGF-p1 ir šio padidėjimo slopinimą CPhG, ec hinakozidu ir akteozidu; tuo tarpu Wesiern blot analizė atskleidė CPhG, echinakozido ir akteozido padidintą smad7 lygį. (6-8 pav.).
Kaip parodyta 6 paveiksle, lyginant su c on2rol grupe( smad2, smad3, p-smad2, p-smad3 baltymų ekspresija buvo žymiai padidėjusi, o smad7 baltymų ekspresija sumažėjo TGF-p1 grupėje. TC (25 , 50, 75, 100 昭/mL) vaistų grupės, smad/ (6A pav.), p-smad2 (6B pav.), Smad 3 (6C pav.), p -smad3 (6D pav.) ekspresija buvo žymiai mažesnė nei TGF-p1 grupėje (卩 < 0,01), o smad7 (6E pav.) baltymų ekspresija buvo didesnė nei TGF-S1 grupėje (p < 0,01) (6 pav.).
Tuo pačiu metu po echinakozido ir akteozido intervencijos HSC buvo išmatuotos ot smad 2, smad3, p-smad2, p-smad3 ir smad7 baltymų išraiškos. Kaip parodyta 7 ir 8 paveiksluose, smad2, smad3, p-smad2 ir p-smad3 baltymų ekspresijos lygiai buvo reikšmingai slopinami (p < 0.05="" arba="" p="">< 0.01)="" ),="" smad7="" baltymo="" ekspresijos="" lygis="" buvo="" padidėjęs="" (p="">< 0,01),="" palyginti="" su="" tgf-p1="" grupe="" (7="" ir="" 8="">

3. Diskusija
Kepenų fibrozė yra viena iš pagrindinių sergamumo ir mirtingumo priežasčių visame pasaulyje, tačiau šiuo metu šios būklės gydymo galimybės yra labai ribotos, todėl mums labai svarbu ieškoti galimų terapinės intervencijos taikinių, siekiant užkirsti kelią )kepenų fibrozės vystymuisi. 16]. Neseniai mokslininkai nustatė, kad įvairūs augaliniai vaistai turi hepatoprotekcinį antifibrozinį poveikį. Daugelis TCHM, tokių kaip Fufang Biejia Ruangan tabletės [17] ir Xiao-chai-hu nuoviras (shosaiko to Japonijoje) [18,19], tūkstančius metų buvo plačiai naudojami kepenų fibrozei gydyti Kinijoje, Korėjoje ir Japonijoje. C. tubulosa sudėtyje yra įvairių aktyvių komponentų, įskaitant CPhG, iridoidus ir polisacharidus. Kaip viena iš veiksmingų C. tubulosa medžiagų bazių, CPhG pasižymi puikiu hepatoprotekciniu aktyvumu, tačiau informacijos apie GPhC ir su ja susijusių junginių antifibrozinį poveikį yra nedaug. Šiame tyrime mes ištyrėme, kaip CPhG, echinakozidas ir akteozidas slopina HSC aktyvavimą ir blokuoja signalizacijos kelią TGF-p1/snaad, kaip galimų antihepticinės fibrozės agentų in vitro.
Bet kokios etiologijos kepenų pažeidimas galiausiai suaktyvins HSC, kurios pereina į fibrogenines miofibroblastų tipo ląsteles [20]. Tai reiškia, kad miofibroblastai
yra gaunami iš HSCss aktyvacijos ir proliferacijos [21], ir yra laikomi kepenų fibrozės formavimosi tarpininku. Dėl šios priežasties atlikome in vitro tyrimus, kad palygintume CPhG, echinakozido ir akteozido paveiktų HSC ląstelių gyvybingumo rodiklius. Rezultatai parodė, kad akteozido slopinamasis poveikis HSC buvo stipriausias, o CPhG poveikis buvo geresnis nei echinakozido. CPhG, echinakozido ir akteozido gydomieji serumai slopino HSC proliferaciją priklausomai nuo dozės.
LDH yra gyvų ląstelių citoplazminis fermentas, kuris normaliomis aplinkybėmis negali prasiskverbti pro ląstelės membraną. Kai ląstelės yra pažeistos, padidėja membranos pralaidumas ir LDH išsiskiria į ląstelės išorę. Paprastai LDH gali nustatyti ląstelių pažeidimo laipsnį [{{0}}]. Tyrimas parodė, kad CPhG, echinakozido ir akteozido gydomojo serumo LDH aktyvumas tik šiek tiek padidėjo, palyginti su kontroline ląstelių grupe, o skirtumas nebuvo statistiškai reikšmingas (p > 0,05), o tai rodo, kad didžioji dalis ląstelės membranos išlaikė vientisumą. , o HSC slopinimas CPhG, echinakozidu ir akteozidu nėra dėl nespecifinio toksiškumo ląstelėms.
Kai įvyksta kepenų pažeidimas, aktyvuoti hepatocitai gali išskirti TGF-pi, kuris savo ruožtu aktyvuoja HSC-T6, todėl TGF-pi yra glaudžiai susijęs su fibroze [25-27]. Šiame tyrime CPhG, echinakozidas ir akteozidas gali būti laikomi patrauklia terapine strategija HSC proliferacijai slopinti po to, kai HSC buvo stimuliuojami wTGF-pi in vitro. Mes spėliojame, kad CPhG, echinakozidas ir akteozidas gali būti naudojami kaip tam tikras kepenų fibrozės gydymas ir (arba) profilaktika ir slopina ankstyvos kepenų fibrozės susidarymą. Kepenų fibrozės formavimasis yra sudėtingas daugiafaktorių ir daugelio ląstelių įsitraukimo procesas. Šiame patologiniame procese ląstelės-ląstelė, ląstelės-citokinai ir ląstelės-matricos sąveika sudaro sudėtingą tinklą. Šiame tinkle kepenų fibrozės vystymąsi galima reguliuoti skirtingais signalizacijos keliais ir priemonėmis. TGF-pi yra klasikinis HSC aktyvatorius ir pagrindinis tarpininkas kepenų fibrozės patogenezėje [28]. CPhG, echinakozidas ir akteozidas gali slopinti su TGF-pi / Smad keliu susijusių mRNR ir baltymų ekspresiją HSC.
TGF-pi daro savo poveikį ląstelėms per Smad signalizacijos kelią ir buvo laikomas pagrindiniu tarpininku kepenų fibrozės ir uždegimo vystymuisi. TGF-pi prisijungus prie TGF-p II tipo receptoriaus, II tipo receptoriaus kinazė fosforilina TGF-p I tipo receptoriaus GS domeną, todėl suaktyvėja I tipo receptoriai [29]. Veikiant p-smad2 ir p-smad3 dviejose serino liekanose jų C terminalo SSXS motyve, reakcijas pasroviui nuo smad signalizacijos kelio suaktyvina I tipo receptorius [30]. P-smad2 ir p-smad3 sudaro oligomerinius kompleksus su smad4, tada patenka į branduolį ir atlieka savo biologinį transkripcijos aktyvumą. Taigi, smad baltymai perduoda signalus tiesiai iš receptoriaus kinazės į branduolį [3i]. Kita vertus, smad7 yra tvirtai sujungtas su TGF-pi receptoriumi, todėl smad 2/3 negali būti suaktyvintas, taip pat slopinami signalo perdavimo būdai [32]. Smad7 gali slopinti p-smad2 ir p-smad3, aktyvuotų smad kompleksų branduolinį perkėlimą ir (CAGA) (9)-MLP-Luc aktyvavimą, todėl sumažėja kolageno I ekspresija ir visiškai slopinama TGF-p signalo perdavimas. [33,34]. Mūsų rezultatai parodė, kad CPhG, echinakozidas ir akteozidas gali sumažinti smad2 ir smad3 mRNR ekspresiją ir padidinti smad7 mRNR ekspresiją; slopina smad2, p-smad2, smad3 ir p-smad3 baltymų ekspresiją ir padidina smad7 baltymų ekspresiją, o tai rodo, kad CPhG, echinakozidas ir akteozidas taip pat vaidina svarbų vaidmenį slopindami HSC aktyvaciją ir taip slopindami kepenų fibrozę, išryškindami galimą antifibrozinį poveikį. mechanizmas.
Įrodyta, kad trijų tiriamųjų medžiagų hepatoprotekcinio poveikio seka yra akteozidas > CPhGs > echinakozidas. Siekiant toliau išsiaiškinti CPhG, echinakozido ir akteozido apsaugos nuo kepenų fibrozės mechanizmo skirtumų priežastis, buvo analizuojamos jų cheminės struktūros. Atrodo, kad fenetilo alkoholio glikozido dalis yra esminė hepatoprotekcinio poveikio struktūra [35]. Akteozidas (C29H36Oi5) yra dvigubas glikozidas, o echinakozidas (C35H46O20) yra triglikozidas, ty echinakozido struktūroje, palyginti su akteozidu, yra papildomas glikozidas, dėl kurio padidėja jo erdvinis dydis. Akteozido hepatoprotekcinis arba HSC aktyvumo slopinimas yra geresnis nei echinakozido, o tai gali būti dėl sterinių kliūčių.

apsaugoti kepenis: cistanche ekstraktas
4. Eksperimentinė dalis
4.1. Cheminės medžiagos ir reagentai
TGF-pi buvo įsigytas iš Peprotech (Rocky Hill, NJ, JAV). HSC-T6 ląstelių linija buvo nupirkta iš Wuhan Procell Gene Bio-technology Co., Ltd. (Uhanas, Kinija). Dimetilsulfoksidas (DMSO) buvo nupirktas iš Sigma Inc. (St. Louis, MO, JAV). Smad2, smad3 ir smad7 pradmenis gamino Šanchajaus Sangon biologinė ir technologijų įmonė (Šanchajus, Kinija). Pirmosios krypties cDNR sintezės rinkinys „Revert Aid“ buvo įsigytas iš „Thermo Scientific“ (Šanchajus, Kinija). Quantifast SYBR žalias PGR rinkinys buvo įsigytas iš QIAGEN GmbH (Hilden, Vokietija). p-smad2 (ser465/467) antikūnai, Smad3 (C67H9) triušio mAb ir p-smad3 (ser423/425) triušio mAb buvo įsigyti iš Cell Signaling Technology (Bostonas, MA, JAV). Smad7 antikūnas buvo nupirktas iš Boster (Uhanas, Kinija). Smad2 polikloninis antikūnas ir p-aktino monokloninis antikūnas buvo įsigyti iš Proteintech (Uhanas, Kinija). Pirminio antikūno aptikimas buvo atliktas naudojant 2 laipsnių antikūnų tirpalą (Alk-Phos. Conjugated, Anti-rabbit) ir 2 laipsnių antikūnų tirpalą (Alk-Phos. Conjugated, Anti-mouse), įsigytą iš Invitrogen™ (Carlsbad, CA, JAV). Laktato dehidrogenazės tyrimo rinkinys buvo iš Nanjing Jiancheng bioinžinerijos instituto (Nandzingas, Kinija).
4.2. Augalinė medžiaga
C. tubulosa buvo surinkta iš Tulufano, Sindziango Uirgurų autonominiame Kinijos regione, 2006 m. gegužės mėn. Augalinę medžiagą C. tubulosa identifikavo Jiang He, Sindziango Materia Medica institutas. Kupono pavyzdys buvo deponuotas Sindziango Materia Medica institute Kinijoje.
4.3. CPhG ir jo junginių išskyrimas ir gryninimas
Džiovinti ir supjaustyti C. tubulosa (60 kg) šakniastiebiai tris kartus iš eilės ekstrahuojami su grįžtamu šaldytuvu 70 procentų etanoliu (4,8 l), o tirpiklis pašalinamas iš sujungtų ekstraktų. gauti etanolio ekstraktą (1,146 kg). Etanolio ekstraktai buvo išgryninti AB-8 derva, kad būtų gautas neapdorotas feniletanolio glikozidų (CPhGs) ekstraktas. Ištirpinus vandenyje, ekstraktas buvo išgrynintas AB-8 adsorbcijos makroporingos dervos chromatografija, kad būtų gautos visos C. tubulosa feniletanolio gliko pusės (CPhGs, 210 g). CPhG buvo užtepti ant ODS OP{{10}} kolonėlės ir iš eilės eliuuojami MeOH-H? (0:1 -^1:0) mišiniais. Eliuatai buvo sujungti į penkias subfrakcijas pagal TLC elgseną, naudojant CHCh-MeOH-H2 tirpiklių sistemą (6:4:0,5). Dėmės buvo vizualizuojamos apipurškus 1 proc. FeCih. Įvairios frakcijos buvo pakartotinai išgrynintos Sephadex LH-20 kolonėlės chromatografija, eliuentu naudojant metanolį, o iš CPhG buvo išskirti du fenilo etanolio glikozidai. Jų struktūros buvo patvirtintos kaip echinakozidas (C35H46O20) ir akteozidas (C29H36O15), naudojant MS, 1H- ir MC-BMR [35], kurių grynumas UV-HPLC buvo nustatytas atitinkamai 99,17 ir 98,92 proc. Echinakozido ir akteozido struktūros parodytos 9 paveiksle.

4.5. CPhG kiekybinis nustatymas
Skysčių chromatografija (HPLC) (LC{{0}}HPLC prietaisas, Shimadzu Co., Kiotas, Japonija) buvo naudojamas echina kosido ir cteozido kiekiui CPhG analizuoti. 30 laipsnių temperatūroje buvo naudojama Phenomenex Gemini ODS kolonėlė (250 x 4,6 mm, 5 |^m). Izokratinė judri fazė, sudaryta iš metanolio-acetonitrilo-1 procentų acto rūgšties (15:10:75, v/v/v), buvo naudojama 40 min., tėkmės greičiu 0,6 ml/min. su UV spinduliais. aptikimas esant 334 nm.
4.6. Ląstelių kultūros
HSC ląstelės buvo kultivuojamos Dulbecco modifikuotoje Eagle terpėje (didelė gliukozė) (DMEM, Pekinas, Kinija), papildyta 10 procentų galvijų vaisiaus serumu (FBS, Gibco, Carlsbad, CA, JAV), 10 0 IU/mL penicilino ir 100 μg/mL streptomicino (HyClone, Logan, UT, JAV) drėgname inkubatoriuje 37 laipsnių temperatūroje su 5 procentais CO2. Šios ląstelės buvo reguliariai subkultūrinamos 0,25 procento (1x) tripsino tirpalu (HyClone, Logan, UT, JAV), o terpė buvo keičiama kas 2 dienas. Iš pradžių ląstelės buvo kultivuojamos su DMEM, turinčiu 10 procentų FBS, 48 valandas. Tada terpė buvo pakeista DMEM be FBS, kad ląstelės badautų 12 valandų. Šios ląstelės buvo dauginamos 48 valandas, o po 48 valandų serumas buvo badomas su 0,5 procento FBS 12 valandų prieš pridedant 5 ng/ml TGF-&1,
4.7. IC50 verčių nustatymas
Po vienos nakties inkubacijos bado terpėje, kurioje yra {{0}},5 procento FBS, HSC ląstelės buvo pasėtos į 96-šulinėlių plokštelę 5 x 10⁴ ląstelių/ml tankiu 24 valandas. HSC ląstelės buvo apdorotos CPhG, echinakozidu ir akteozidu skirtingomis koncentracijomis (0, 3,90625, 7,8125, 15,625, 31,25, 62,5, 125, 250 ir 500 μg/mL) 48 valandas. Kiekviena koncentracija turėjo keturis šulinius. Gydymo pabaigoje 20 卩L MTT [3-(4,5-dimetiltiazol-2-il)-2,5-difeniltetrazolio bromidas] (Sigma; buvo pridėta 5 mg/ml) ir ląstelės buvo inkubuojamos dar 4 valandas. Pašalinus supernatantą, į kiekvieną šulinėlį buvo pridėta DMSO (200 rL). 10 minučių purtant plokštelę ant purtyklės, IC50 vertės buvo gautos išmatuojant absorbciją esant 490 nm bangos ilgiui, naudojant fermentų žymėjimo prietaisą (Benchmark PLUS, Hercules, CA, JAV), šis tyrimas buvo atliktas tris kartus. CPhG, echinakozido ir akteozido IC50 vertės buvo atitinkamai 119,125, 520,345 ir 6,999 Rg/ml.
4.8. Ląstelių dauginimąsi slopinantis poveikis ir ląstelių gyvybingumas
HSC ląstelės buvo veikiamos skirtingų koncentracijų CPhG (25 50 100 Rg/ml), echinakozido (125 250 500 Rg/ml) ir akteozido (1,5, 3, 6 Rg/ml). Skirtingos koncentracijos CPhG, echinakozidas ir akteozidas buvo dedamos ant plokštelės keturiuose iš eilės šuliniuose ir inkubuojamos 48 valandas. Ląstelių proliferaciją slopinantis poveikis ir ląstelių gyvybingumo lygis (remiantis LDH aktyvumo, išsiskiriančio iš pažeistų ląstelių į supernatantą, matavimu [36]) buvo nustatyti MTT tyrimu. Slopinimo greitis buvo apskaičiuotas pagal šią formulę [37]:
Slopinimo laipsnis (procentais ) " [1 – (vidutinė eksperimentinės grupės absorbcija / vidutinė tuščiosios bandinio grupės absorbcija)] x 100 procentų
Pagal komplekto instrukcijas,
LDH (U/L) {{0}} (išmatuotas OD – kontrolinis OD)/(standartinis OD – tuščiasis OD) x 0,2 mmol/L x 1000
Mūsų preliminarus tyrimas parodė, kad CPhG, echinakozidas ir akteozidas neturėjo įtakos ląstelių gyvybingumui.
4.9. TGF-^1 antiproliferacinė veikla
Ilgą laiką buvo manoma, kad TGF-p1 aktyvuotas HSC yra susijęs su kepenų fibroze, o HSC augimo slopinimas buvo pasiūlytas kaip kepenų fibrozės gydymo metodas [36, 38]. CPhG, echinakozido ir akteozido antiproliferacinis poveikis HSC, aktyvuotiems TGF-p1, buvo nustatytas MTT tyrimu [39]. Naudojant aprašytas procedūras ir vaistų koncentracijas,
eksperimentinės grupės apėmė kontrolinę grupę, TGF-pi grupę, TGF-pi ir skirtingos koncentracijos vaistų grupes. Visos ląstelių grupės, išskyrus kontrolinę, buvo kultivuojamos su DMEM, turinčiu 50 ng/mL TGF-p1 (be FBS) 24 valandas. Ląstelių proliferaciją slopinantis aktyvumas buvo apskaičiuotas kaip 100 x (apdoroto junginio absorbcija - fono šviesos absorbcija) / (modelio absorbcija - fono šviesos absorbcija).
4.10. Atvirkštinės transkripcijos-polimerazės grandininė reakcija (RT-PGR)
Smad2, smad3 ir smad7 mRNR ekspresijos lygis buvo nustatytas realaus laiko PGR. Norint nustatyti mRNR ekspresiją HSC ląstelėse, ląstelės (5 x 10⁴ ląstelės) buvo pasėtos į šešių šulinėlių plokšteles su 30 ml DMEM su 10 procentų FBS ir inkubuojamos per naktį 37 laipsnių temperatūroje. 5 procentai CO2. Po to, kai auginimo terpė buvo pakeista į DMEM be serumo, į duobutes buvo įpilta CPhG (100, 50, 25 g/ml), echinakozido (500 250 125 µg/mL) ir akteozido (6, 3, 1,5 µg/mL). Po 48 valandų inkubacijos su CPhG ir monomerų kompozicijomis, visa RNR buvo ekstrahuota naudojant TRIzol reagentą (Invitrogen, Carlsbad, CA, JAV) ir 15 s energingai maišoma su chloroformu. Po to, kai buvo leidžiama stovėti kambario temperatūroje 3 minutes, lizatas buvo centrifuguojamas 12, 000 xg 15 minučių 4 laipsnių temperatūroje. Vandeninėje fazėje esanti RNR buvo nusodinta izopropanoliu, o viršutinė vandeninė fazė perkelta į naują mikrocentrifugos mėgintuvėlį. RNR buvo nusodinta pridedant 0,75 procento etanolio, po to į mikrocentrifugos mėgintuvėlį ir centrifuguojama 12,000 xg 4 laipsnių temperatūroje ne ilgiau kaip 5 min. Supernatantas buvo pašalintas ir RNR džiovinama kambario temperatūroje 5-10 min. Pradmenys (Sangon) buvo sukurti naudojant Batch Primer 3 ir yra išvardyti 4 lentelėje. Rezultatai buvo normalizuoti pagal namų ūkio geno p-aktino mRNR kaip vidinę kontrolę ir pateikiami kaip santykiniai mRNR lygiai. Reakcijos buvo atliktos su 8 |^L iQ SYBR Green Supermix, 1 10 pM pradmenų pora, 8,5 distiliuoto vandens ir 2,5 rL cDNR.
Kiekviena polimerazės grandininė reakcija buvo vykdoma tokiomis sąlygomis: 95 laipsniais 3 min., po to 40 ciklų po 10 s 95 laipsnių kampu, 30 s 55 laipsnių kampu ir 10 s 55 laipsnių -95 laipsniu pratęsimui, po to vienas fluorescencijos matavimas. Galutiniai rezultatai aprašyti naudojant santykines reikšmes (2_AACt). Skaičiavimas ir analizė atlikta iQ5 Real Time PCR Detection System.

4.11. Western blot analizė
Visų ląstelių ekstraktai buvo paruošti naudojant Radioimmunoprecipitation Assay (RIPA) buferį (Thermo Fisher Scientific, Inc.) su 1% Halt proteazės inhibitoriumi ir 1% Halt fosfatazės inhibitoriumi (Thermo Fisher Scientific, Inc.). Bendras baltymas buvo naudojamas smad2, p-smad2, smad3, p-smad3 ir smad7 aptikimui. Baltymų koncentracija buvo išmatuota ir kiekybiškai įvertinta Bradfordo metodu. Baltymai (10-30 Rg) buvo atskirti 10 procentų SDS-PAGE gelyje ir perkelti į polivinilidenfluorido (PVDF) membranas (Millipore, Boston, MA, JAV). Membranos buvo blokuojamos 1 valandą kambario temperatūroje 5 procentų galvijų serumo albuminu ir pirminiais antikūnais (smad2 polikloninis antikūnas, p-smad2 antikūnas, smad3 triušio mAb ir p-smad3 triušio mAb, praskiedimas 1:1000; triušio mAb smad7, 1 :200 praskiedimas, p-aktino monokloninis antikūnas, 1:5000 praskiedimas) buvo inkubuojami 4 laipsnių temperatūroje per naktį. Atitinkamas Alk-Phos. konjuguoti antriniai antikūnai buvo inkubuojami kambario temperatūroje. Galiausiai membranos tris kartus plaunamos 1 x Tris-HCl fiziologiniu tirpalu su 0,1 procento Tween 20, o signalai buvo nuskaityti ir vizualizuoti naudojant GEL DOC XR vaizdo gavimo sistemą (Bio-Rad, Hercules, CA, JAV). Densitometrinė analizė buvo atlikta su dominančiais baltymais ir normalizuota iki p-aktino naudojant GEL DOC Image Studio programinę įrangą (Bio-Rad). p-aktinas buvo naudojamas kaip vidinė kontrolė.
4.12. Statistinė analizė
Duomenys buvo išreikšti kaip vidutinis 土 standartinis nuokrypis (SD). Statistinė analizė buvo atlikta naudojant SPSS 16.{1}} programinę įrangą (Xinjiang Medical University). IC50 reikšmėms analizuoti naudota probit analizė. Skirtumo reikšmingumas buvo apskaičiuotas vienpusio ANOVA testu, o reikšmės, kurių p < 0,05,="" buvo="" laikomos="" statistiškai="">
5. Išvados
Apibendrinant galima pasakyti, kad CPhG iš C. tubulosa ir jo komponentų echinakozido ir akteozido pasižymi reikšmingu antifibroziniu poveikiu. Tarp jų akteozido aktyvumas yra stipriausias, o CPhG aktyvumas yra tarp dviejų junginių. TGF-p1/Smad signalizacijos aktyvinimo slopinimas gali būti pagrindinis mechanizmas, kuriuo CPhG apsaugo nuo lėtinės kepenų ligos, susijusios su fibroze, o echinakozidas ir akteozidas yra veiksmingas C. tubulosa antifibrozinės medžiagos pagrindas.
Padėkos:Šį tyrimą palaikė Kinijos nacionalinis gamtos mokslų fondas (81260624). Autoriai norėtų nuoširdžiai padėkoti profesoriui Tao Liu už šio darbo rašymo tobulinimą.
Autoriaus indėlis:TL, JZ, S.-PY, LM ir S.-LZ sugalvojo ir suprojektavo eksperimentus. S.-PY, TL ir JZ išanalizavo duomenis. S.-PY ir JZ parašė rankraštį. TL, LM ir JZ peržiūrėjo rankraštį. Visi autoriai perskaitė ir patvirtino galutinį rankraštį.
Interesų konfliktai:Autoriai pareiškia, kad nėra interesų konflikto.

Nuorodos
1. Subramoniam, A.; Pushpangadan, P. Kepenų ligų fitomedicinos kūrimas. Ind. J. Pharmacol. 1999, 31, 166-175.
2. Friedman, SL Ligos mechanizmai: kepenų fibrozės mechanizmai ir terapinis poveikis. Nat. Clin. Praktika. Gastroenterolis Hepatol. 2004,1, 98-105. [CrossRef] [PubMed]
3. Friedmanas, SL; Roll, FJ; Boyles, J.; Bissell, DM Kepenų lipocitai: pagrindinės normalių žiurkių kepenų kolageną gaminančios ląstelės. Proc. Natl. Akad. Sci. USA, 1985, 82, 8681-8685. [CrossRef] [PubMed]
4. Friedmanas, SL; Bansal, MB Kepenų fibrozės atstatymas一Faktas ar fantazija? H叩atology, 2006, 43, S82-S88. [CrossRef] [PubMed]
5. Ahmadas, A.; Ahmad, R. Kepenų fibrozės mechanizmo supratimas ir galimi gydymo metodai. Saudo Arabijos J. Gastroenterolis. 2012, 18, 155-167. [CrossRef] [PubMed]
6. Petras, H.; Varnas; Zhang, LB Orobanchaceae Ventenat. Kinijos flora, 23 leidimas; Kinijos floros redakcinis komitetas: Kinijos mokslų akademija, Pekinas, Kinija, 2013 m.; p. 1-16.
7. Kinijos Liaudies Respublikos sanitarinės ministerijos Kinijos farmakopėjos komisija. Kinijos farmakopėja; 1 dalis; Chemijos pramonės leidykla: Pekinas, Kinija, 2010 m.; p. 126.
8. Li, J.; Huangas, D.; Jis, L. Roucongrong (Herba Cistanches Deserticolae) poveikis pelių reprodukciniam toksiškumui, kurį sukelia Leigongteng glikozidas (Radix et Rhizoma Tripterygii). J. Tradit. Smakras. Med. 2014, 34, 324-332. [CrossRef]
9. Xing, Y.; Liao, J.; Tangas, Y.; Zhang, P.; Tan, C.; NSI.; Wu, X.; Li, N.; Jia, X. AKF ir trombocitų agregacijos inhibitoriai iš Tamarix hohenackeri Bunge (Herba Cistanches šeimininko augalo), augančio Sindziange. Farmakogn. Mag. 2014, 10, 111-118. [PubMed]
10. Jia, Y; Guanas, Q.; Jiang, Y.; Salhas, B.; Guo, Y.; Tu, P.; Du, C. Natrio dekstrano sulfato sukelto kolito pagerėjimas pelėms naudojant echinakozidu praturtintą Cistanche tubulosa ekstraktą. Fitoteris. Res. 2014, 28, 110-119. [CrossRef] [PubMed]
11. Wong, HS; Ko, KM Herba Cistanches stimuliuoja ląstelių glutationo redokso ciklą reaktyviosiomis deguonies rūšimis, susidarančiomis iš mitochondrijų kvėpavimo H9c2 kardiomiocituose. Pharm. Biol. 2013, 51, 64-73. [CrossRef] [PubMed]
12. Martynas, A.; Clynes, M. Rūgštinė fosfatazė: toksiškumo in vitro bandymų baigtis. Vitro ląstelė. Dev. Biol. 1991, 27, 183-184. [CrossRef]
13. Lechuga, CG; Hernandez-Nazara, ZH; Dominguez Rosales, JA; Morris, ER; Rinkonas, AR; Rivas-Estilla, AM; Esteban-Gamboa, A.; Rojkind, M. TGF-01 moduliuoja matricos metaloproteinazės-13 ekspresiją kepenų žvaigždžių ląstelėse sudėtingais mechanizmais, apimančiais p38MAPK, PI3-kinazę, AKT ir p70S6k. Esu. J. Physiol. Gastrointest Kepenų fiziol. 2004, 287, G974-G987. [CrossRef] [PubMed]
14. Nguyen, J.; Tangas, SY; Nguyen, D.; Alliston, T. Load reguliuoja kaulų formavimąsi ir sklerostino ekspresiją per nuo TGFp priklausomą mechanizmą. PLoS ONE 2013, 8, e53813. [CrossRef] [PubMed]
15. Pessah, M.; Marais, J.; Prunier, C.; Ferrand, N.; Lallemandas, F.; Mauviel, A.; Atfi, A. C-Jun asocijuojasi su onkoproteinu Ski ir slopina Smad2 transkripcijos aktyvumą. J. Biol. Chem. 2002, 277, 29094-29100. [CrossRef] [PubMed]
16. Dingas, N.; Yu, RT; Subramaniam, N.; Šermanas, MH; Wilsonas, C.; Rao, R.; Leblanc, M.; Coulter, S.; Jis, M.; Scott, C.; ir kt. Vitamino D receptorių / SMAD genomo grandinė sukelia kepenų fibrozinį atsaką. Cell 2013,153, 601-613. [CrossRef] [PubMed]
17. Yang, FR; Iltis, BW; Lou, JS Fufang Biejia Ruangan Pills poveikis kepenų fibrozei in vivo ir in vitro. Pasaulis J. Gastroenterolis. 2013, 19, 5326-5333. [CrossRef] [PubMed]
18. Sakaida, I.; Hironaka, K.; Kimura, T.; Terai, S.; Yamasaki, T.; Okita, K. Žoliniai vaistai Sho-saiko-to (TJ-9) padidina matricos metaloproteinazių (MMP) ekspresiją ir sumažina metaloproteinazių inhibitorių (TIMP) raišką žiurkės žvaigždžių ląstelėse. Life Sci. 2004, 74, 2251-2263. [CrossRef] [PubMed]
19. Chen, M.; Chen, J.; Tsai, C.; Wang, W.; Chang, D.; Tu, DG; Hsieh, HY TGF-01 ir citokinų vaidmuo reguliuojant Sho-saiko-to kepenų fibrozę žiurkės/s tulžies latako perrišimo modelyje. J. Ethnopharmacol. 2005, 97, 7-13. [CrossRef] [PubMed]
20. Bolarinas, DM; Azinge, EC Biocheminiai žymenys, ekstraląsteliniai komponentai sergant kepenų fibroze ir ciroze. Nig. QJ Hosp. Med. 2007, 17, 42-52. [CrossRef] [PubMed]
21. Kongas, D.; Zheng, S.; Lu, Y. Miofibroblastų šaltinis ir vaidmuo kepenų fibrozėje. Smakras. Pharmacol. Bull. 2011, 27, 297-300.
22. De Lavor, MSL; Binda, NS; Fukušima, FB; Caldeira, FMC; Da Silva, JF; Silva, BRO; de Oliveira, KM; Martins Bde, C.; Torresas, BB; Rosado, IR; ir kt. Išemijos-reperfuzijos modelis žiurkės nugaros smegenyse: ląstelių gyvybingumo ir apoptozės signalizacijos tyrimas. Tarpt. J. Clin. Exp. Pathol. 2015, 8, 9941-9949. [PubMed]
23. Bahadar, H.; Maqbool, F.; Niaz, K.; Abdollahi, M. Nanodalelių toksiškumas ir dabartinių eksperimentinių modelių apžvalga. Iranas Biomed. J. 2016, 20, 1-11. [PubMed]